文章中心
了解、体验、感悟、分享——汇聚平台使用教程与科研动态。
HIV-1 Vpr竟让CD4+ T细胞短暂变身“类B细胞”
原文:HIV-1 Vpr Drives a B Cell-Like Phenotype in Primary CD4+ T Cells.
期刊:MedComm(影响因子 14.1) | PubMed | PMC 全文(含 PDF)
在抗逆转录病毒治疗(ART)已经能够长期抑制HIV-1复制的今天,艾滋病依然无法被根治。核心难题在于:病毒会在体内建立“潜伏病毒库”,而其中最主要的宿主细胞就是CD4+ T细胞。过去几十年里,研究者大多把注意力放在病毒如何进入、整合、复制,以及如何耗竭免疫系统;但一个越来越受关注的问题是——HIV-1的单个病毒蛋白,是否会主动“改写”宿主细胞的身份和转录程序?
近日,一项发表在MedComm(影响因子14.1)上的研究给出了一个出人意料的答案:HIV-1的辅助蛋白Vpr,竟然能在急性感染期间,让一部分被感染的成熟CD4+ T细胞表达出典型的B细胞相关基因,形成一种短暂的“类B细胞(B cell-like)”转录状态。这不是真正的谱系转换,而是一种由病毒驱动的、可逆的转录与表观遗传重编程。
研究背景:不只是“杀细胞”,病毒蛋白在重塑免疫身份
CD4+ T细胞是HIV-1的主要细胞靶标。除了直接细胞病变效应外,HIV-1感染还会加速免疫细胞耗竭、破坏细胞因子产生、损害B细胞和细胞毒性T淋巴细胞功能,并改变细胞增殖与分化状态。论文在引言中指出,这些病理特征并不能完全由病毒复制本身解释,说明单个病毒蛋白可能主动重塑宿主细胞状态。
其中,HIV-1感染者常出现B细胞稳态紊乱:虽然B细胞本身不被有效感染,但患者会出现高丙种球蛋白血症、多克隆B细胞活化、耗竭或非典型记忆B细胞亚群扩张,以及疫苗应答受损。也就是说,HIV-1可能通过感染CD4+ T细胞或旁观免疫细胞,间接扰乱B细胞生物学。然而,连接“CD4+ T细胞被感染”和“B细胞异常状态”的细胞与分子机制,此前并不清楚。
HIV-1编码有限的调控和辅助蛋白,包括Tat、Rev、Vif、Vpr、Vpu和Nef。Vpr尤其特殊:它被包装进病毒颗粒,在感染最早期就被递送到新感染的细胞中。虽然Vpr在体外并非病毒复制所绝对必需,但它在体内显著增强病毒适应性,并参与细胞周期阻滞、凋亡调控和宿主基因表达调控。近年研究还提示,Vpr能在原代CD4+ T细胞中诱导广泛的转录重塑。但Vpr是否能驱动“跨谱系”的转录程序、重塑免疫细胞身份,仍是一个开放问题。
核心发现:单细胞多组学捕捉到“HIV-1 RNA+ 类B细胞”
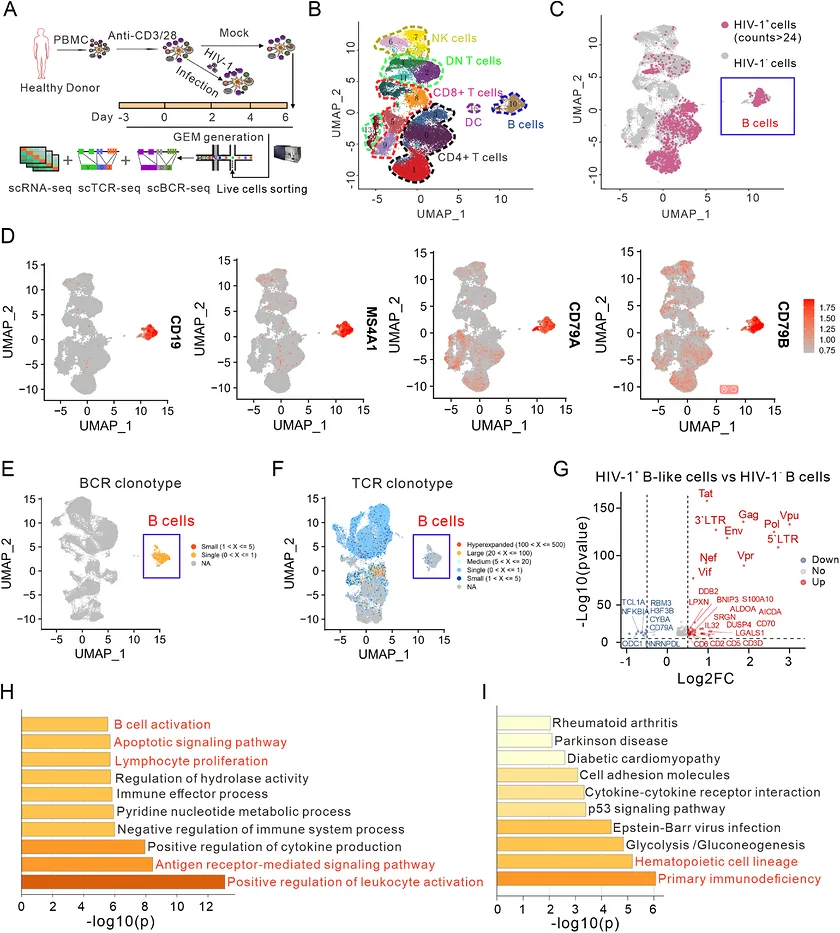
为了回答这个问题,研究团队对健康供者外周血单个核细胞(PBMCs)在HIV-1感染前后进行了单细胞RNA测序(scRNA-seq)、单细胞T细胞受体测序(scTCR-seq)和单细胞B细胞受体测序(scBCR-seq)。他们用抗CD3/CD28抗体激活PBMC 3天,再用CXCR4嗜性的HIV-1假病毒感染,并在感染后第2、4、6天收集细胞。
无监督聚类识别出16个免疫细胞群,包括CD4+ T细胞、CD8+ T细胞、双阴性T细胞、NK细胞、B细胞等。正如预期,HIV-1 RNA阳性细胞主要位于CD4+ T细胞和双阴性T细胞簇中;但令人意外的是,一部分HIV-1 RNA阳性细胞竟然落在了由典型B细胞标志物定义的转录簇里。
这些细胞高表达CD19、MS4A1(CD20)、CD79A、CD79B等B细胞标志基因。更有趣的是,其中一些细胞同时表达T细胞相关转录本CD3D、CD3E和CD4,并保留可检测的TCR克隆型,却也富集BCR克隆型——提示它们处于一种“混合转录状态”:既是T细胞来源,又获得了B细胞相关特征。
差异表达分析显示,这些HIV-1 RNA+类B细胞中病毒转录本(LTR、Gag、Pol、Env、Tat及辅助基因)丰富;上调基因富集在淋巴细胞活化、增殖、分化以及原发性免疫缺陷等通路上。
机制解析:Vpr是驱动“类B细胞表型”的关键病毒蛋白
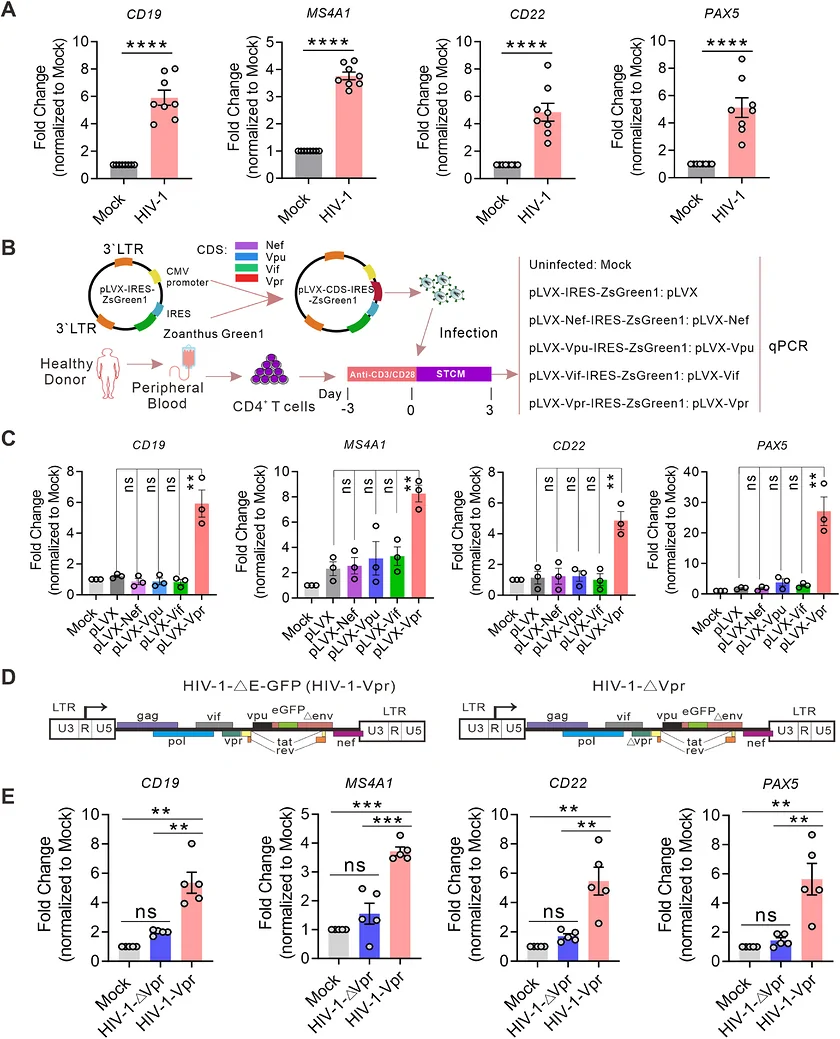
接下来,研究者追问:是什么导致了这种表型?他们先验证HIV-1感染原代CD4+ T细胞后,CD19、MS4A1、CD22和PAX5等典型B细胞相关基因表达上升。
然后,他们分别用慢病毒载体单独表达HIV-1辅助蛋白Vpr、Nef、Vif、Vpu。结果非常清晰:只有Vpr足以强烈诱导CD19、MS4A1、CD22和PAX5的表达,其中PAX5反应最强,比对照细胞高出20倍以上;而Nef、Vif、Vpu几乎没有作用。
为了确认在真实病毒感染背景下Vpr是否必需,团队构建了Vpr缺陷型HIV-1(HIV-1-ΔVpr)。野生型病毒感染会显著上调这些B细胞基因,而删除Vpr后,这一效应基本消失。增益和缺失功能实验共同证明:Vpr既是充分的,也是必要的,是原代CD4+ T细胞中B细胞相关转录程序的主要病毒决定因子。
时间动态:不是永久变身,而是短暂“可塑性”
这种类B细胞状态会持续多久?时间序列实验给出了明确答案。感染后,CD19、CD20和PAX5的mRNA迅速上升,在第3到第9天之间达到峰值,到第12天逐渐回到基线附近。蛋白水平也呈现类似动力学:第3天还看不到CD19或CD20蛋白明显增加,第6天显著上调,随后逐步下降;PAX5和CD19总蛋白也在第3–9天短暂升高后回归。
这说明Vpr诱导的不是稳定的谱系转换,而是一种短暂的、谱系相关转录可塑性状态。它最突出地出现在感染早期,并随着时间推移逐渐减弱。
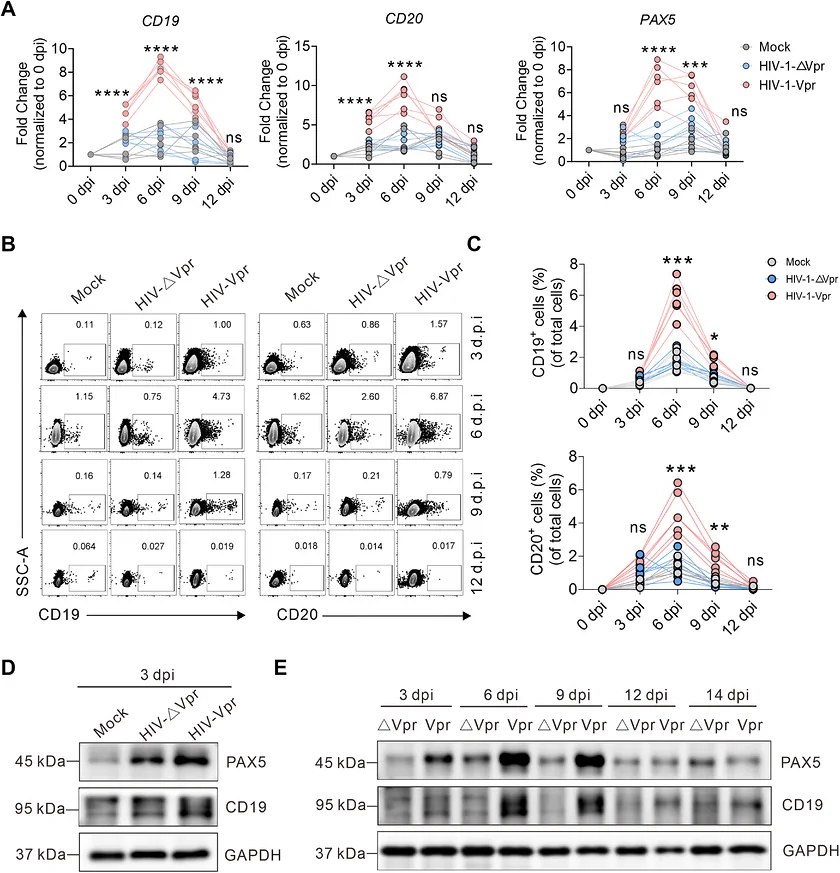
此外,由于感染者血清中存在Vpr,且Vpr可影响旁观细胞,研究者还建立了自体CD4+ T细胞/B细胞共培养系统。结果显示,在Vpr存在条件下,共培养中CD19+细胞比例比ΔVpr对照高出五倍以上;同时CD4+ T细胞增殖减少,而Ki-67+ CD19+ B细胞增加,IgD+ IgM+ B细胞比例下降。这意味着Vpr不仅改变被感染T细胞自身,还可能通过局部环境影响邻近B细胞表型。
方法亮点:单细胞+ bulk RNA-seq+ ATAC-seq多层解析
这项研究的另一个价值在于技术路线的整合。 bulk检测会把感染细胞、旁观细胞和未感染细胞“平均化”,从而掩盖稀有或短暂状态;而单细胞多组学能在单个细胞层面同时分析病毒转录本、宿主基因表达和染色质可及性。
在bulk RNA-seq设计中,团队设置了三种互补条件:野生型与Vpr缺陷病毒感染、分选出的产物性感染(GFP+)与旁观(GFP−)群体、以及慢病毒Vpr过表达。主成分分析显示,pLVX-Vpr感染细胞的转录谱更接近HIV-1-Vpr-GFPn(旁观)细胞,而不是产物性感染细胞——提示病毒颗粒递送的Vpr即使在没有产物性感染的细胞中,也能引起显著转录重塑。
比较HIV-1-Vpr-GFPn与HIV-1-ΔVpr-GFPn细胞,发现了998个差异表达基因。通路富集在三种实验系统中高度一致:Vpr诱导的基因显著富集于B细胞受体信号、造血细胞谱系特化、细胞因子信号、NF-κB信号和PI3K-Akt信号等;CD19、CD79A、PAX5、FCRL5、CD24等典型B细胞基因是最强诱导转录本之一。
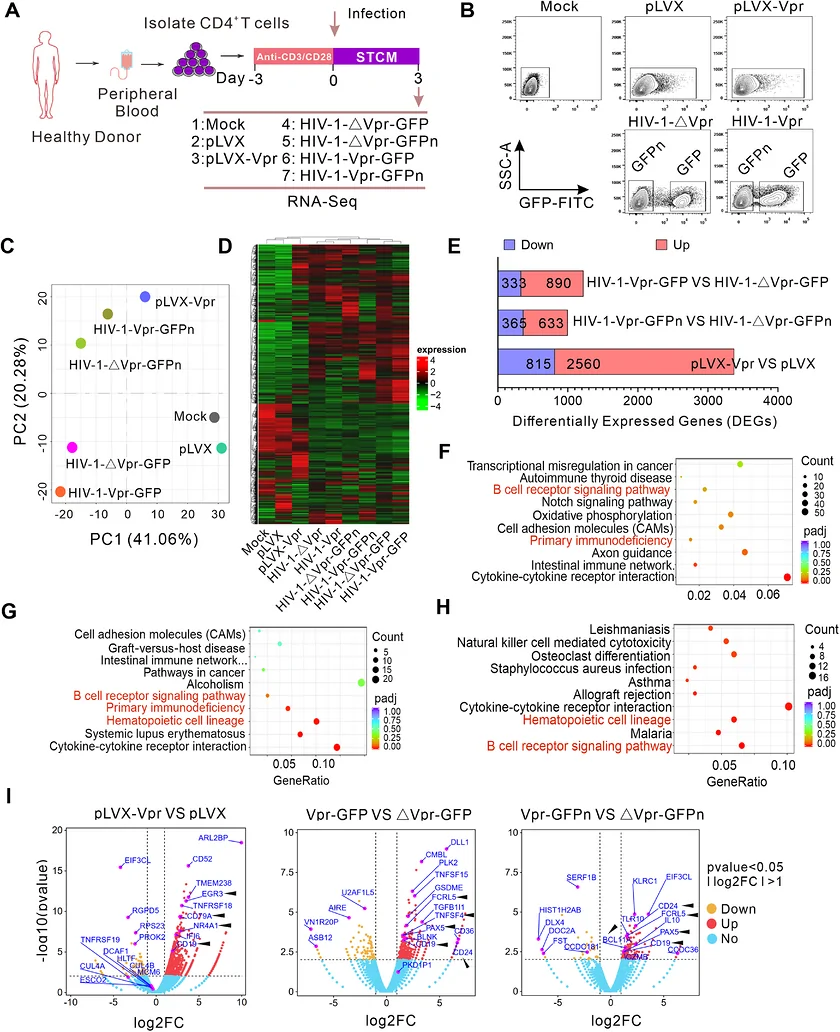
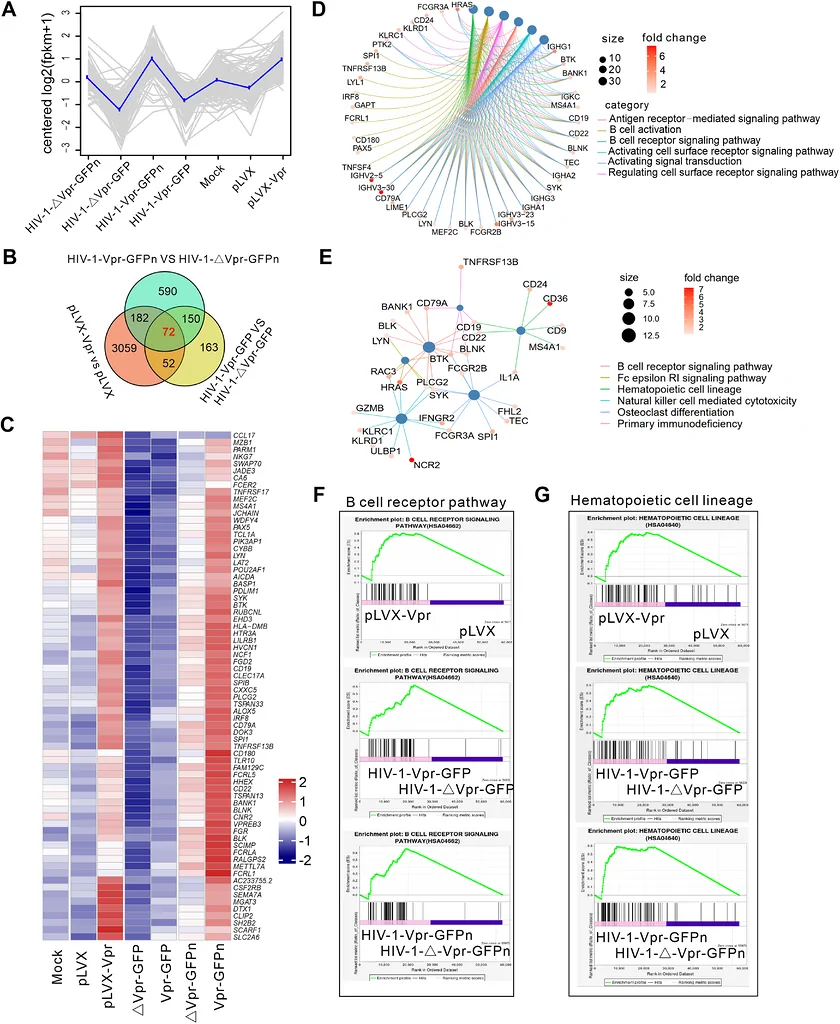
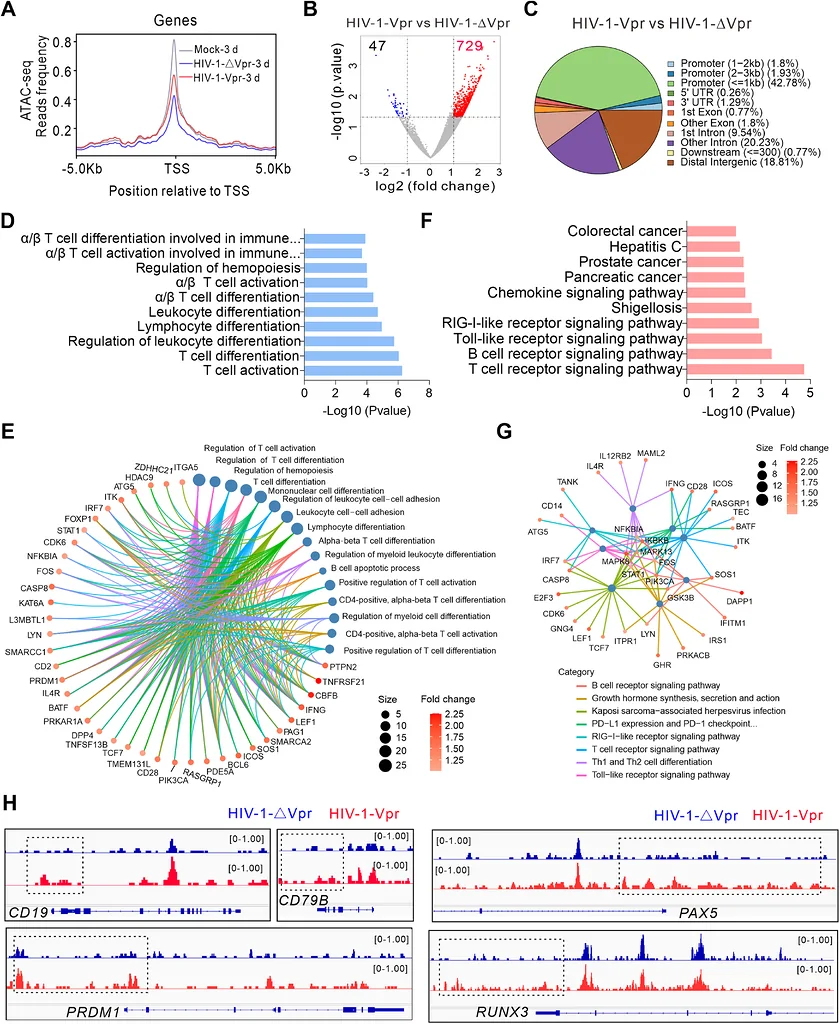
表观遗传层面,ATAC-seq进一步显示Vpr促进淋巴细胞分化和B细胞发育相关基因位点的染色质可及性增加,包括PAX5、EBF1和PRDM1等。也就是说,Vpr不只是“打开”几个基因,而是在转录和染色质两个层面上广泛重编程宿主细胞。
应用意义:重新理解HIV-1如何操纵宿主免疫身份
这项研究的意义在于,它揭示了一个此前未被认识的HIV-1致病机制:成熟CD4+ T细胞在Vpr驱动下,可以短暂获得B细胞样转录身份。这扩展了我们对“病毒辅助蛋白如何操纵宿主细胞状态”的认知。
对基础科研而言,它说明病毒蛋白的作用远不止拮抗限制因子或协助复制;它们能跨越谱系边界,激活另一类免疫细胞的分化程序。对临床而言,虽然这种状态是短暂的,但它可能参与急性感染期免疫重塑,并解释HIV-1感染者中B细胞异常的部分来源——尤其是当Vpr还能通过旁观效应影响邻近B细胞时。
当然,作者也明确指出,这一程序是 transient(短暂)且可逆的,并非真正把T细胞变成B细胞。未来研究需要进一步厘清:这种混合状态是否影响潜伏库建立、免疫逃逸或疫苗应答;以及针对Vpr介导的转录重编程,是否能成为干预HIV-1免疫紊乱的新切入点。
总体而言,该工作通过整合单细胞转录组、bulk转录组和ATAC-seq,结合病毒感染与蛋白过表达/缺失系统,提供了高分辨率证据:HIV-1 Vpr是成熟CD4+ T细胞中出现B细胞样转录程序的关键驱动因子,为理解HIV-1诱导的免疫细胞状态重塑提供了新视角。
本文图片转载自 PMC 开放获取全文,仅供学习参考,请以原文为准。