文章中心
了解、体验、感悟、分享——汇聚平台使用教程与科研动态。
谷氨酰胺代谢:从生理稳态到癌症治疗的新靶点
原文:Glutamine Metabolism in Health and Diseases.
期刊:MedComm(影响因子 14.1) | PubMed | PMC 全文(含 PDF)
谷氨酰胺(glutamine)是血液和组织中含量最丰富的非必需氨基酸,其浓度可达其他氨基酸的 10 到 100 倍。传统营养学将其归为“非必需氨基酸”,因为人体多数组织能够自行合成;但在创伤、大手术、脓毒症、恶性肿瘤等病理或生理应激状态下,内源性合成往往供不应求,谷氨酰胺便转变为“条件必需氨基酸”。近期发表在 MedComm(影响因子 14.1)上的综述《Glutamine Metabolism in Health and Diseases》系统梳理了谷氨酰胺在合成、转运、分解及疾病中的多重角色,为理解代谢重编程和开发靶向疗法提供了全景视角。
研究背景:不只是“燃料”,更是代谢枢纽
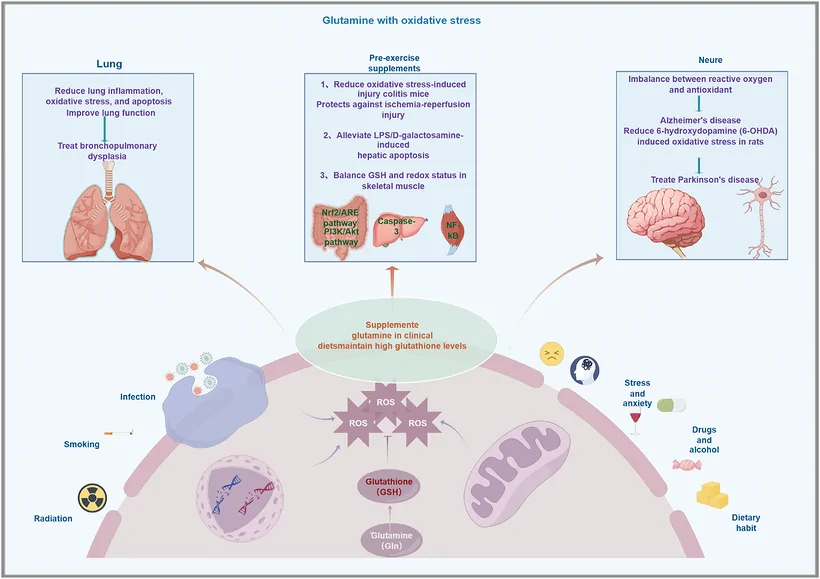
在生理条件下,谷氨酰胺远不止是一种蛋白质组成单元。它参与细胞增殖、免疫调节、酸碱平衡和全身代谢平衡:作为氮源,它支撑核苷酸、蛋白质和非必需氨基酸的合成;作为碳源,它经谷氨酰胺酶(GLS/GLS2)转化为谷氨酸,再生成 α-酮戊二酸(α-KG)进入三羧酸循环(TCA)供能;同时,它还是合成谷胱甘肽(GSH)的前体,帮助维持氧化还原稳态。
更重要的是,谷氨酰胺是机体“系统性的氮载体”。骨骼肌是新生谷氨酰胺合成的主场所,合成后释放入血,被小肠、肝脏、免疫细胞等摄取;在肾脏近曲小管,每分子谷氨酰胺分解可产生两个 NH₄⁺ 和两个 HCO₃⁻,前者排酸、后者回补碱储备,直接维系酸碱平衡。在肠道,它维护黏膜屏障;在免疫系统,它驱动淋巴细胞增殖、巨噬细胞吞噬和中性粒细胞功能。
核心发现:从分子通路到疾病机制
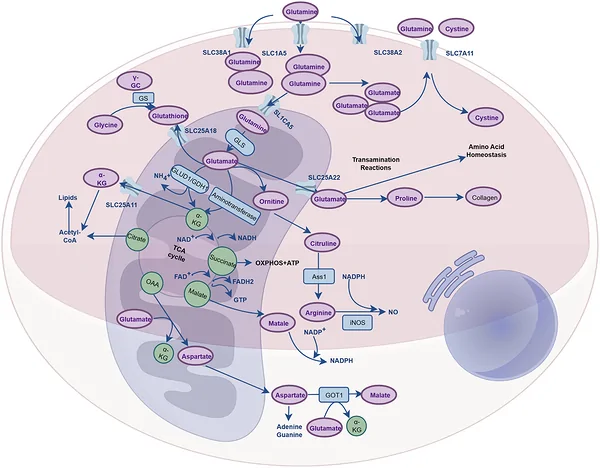
论文首先详述了谷氨酰胺的基础代谢路线。细胞通过质膜转运体 SLC1A5(亦称 ASCT2)、SLC38A1、SLC38A2 摄取谷氨酰胺;进入线粒体则需 SLC1A5 的短变体(SLC1A5_var)介导。在线粒体内,谷氨酰胺被 GLS 或 GLS2 水解为谷氨酸,再经谷氨酸脱氢酶(GLUD1/GDH1)或转氨酶(GPT2、GOT2)转化为 α-KG。α-KG 既可进入 TCA 循环氧化磷酸化产生 ATP,也可在缺氧条件下经还原羧化生成柠檬酸,支持脂质合成。
转运体 SLC1A5 本身具有精密的调控机制。其结构为同源三聚体,采用“电梯式”转运模式;第 467 位半胱氨酸(C467)的巯基状态可在氧化(二硫键)与还原(巯基)之间切换,从而像开关一样控制转运活性“OFF/ON”。该转运体还偶联 mTOR 信号,对细胞内谷氨酰胺和天冬酰胺水平敏感,在肝癌等模型中沉默 ASCT2 会抑制生长并诱导凋亡,因此成为肿瘤治疗的重要候选靶点。
在应激响应方面,细胞面临氧化、营养缺乏、热、机械、DNA 损伤和渗透压等压力时,谷氨酰胺代谢被重编程以提供保护。例如,在营养不良或氧化应激下,某些细胞对谷氨酰胺的消耗量可等同甚至超过葡萄糖;它还为热休克蛋白(HSPs)表达所必需。
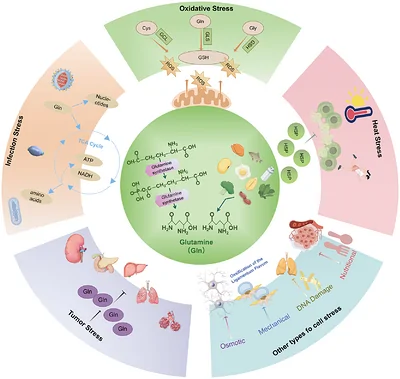
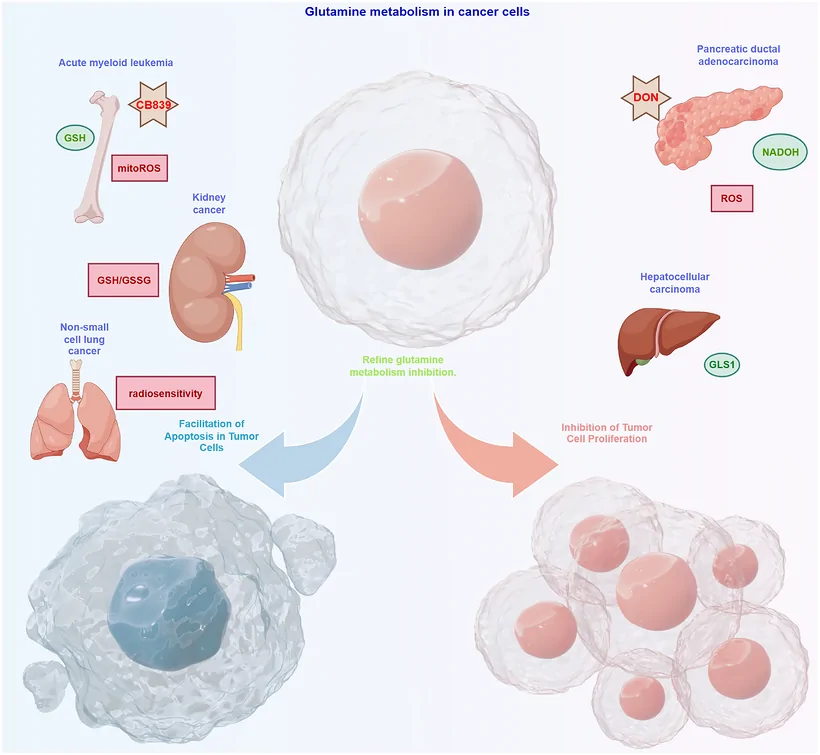
在疾病层面,肿瘤细胞表现出对谷氨酰胺的“成瘾性”。快速增殖使癌细胞高度依赖谷氨酰胺维持能量、氧化还原平衡和大分子合成。GLS1 在多种癌症中过表达,而 GLS2 则受 p53 调控、可能发挥抑癌作用。谷氨酸脱氢酶 GDH 在胶质母细胞瘤应对葡萄糖代谢障碍时尤为关键;其活性升高还与结直肠癌预后和转移相关。GLUD1 功能获得性突变会导致高胰岛素血症-高氨血症综合征。
神经系统同样深受谷氨酰胺代谢影响。神经元与星形胶质细胞之间的“谷氨酸-谷氨酰胺循环”保障兴奋性神经递质的回收与再利用:突触释放的谷氨酸被星形胶质细胞摄取后,经谷氨酰胺合成酶转为谷氨酰胺,再运回神经元。该循环紊乱与阿尔茨海默病(AD)和癫痫等相关——AD 患者及模型中星形胶质细胞谷氨酰胺合成酶活性下降、TCA 循环减弱,导致谷氨酸堆积和兴奋性毒性。
方法亮点:全景式综述与多组学视角
作为一篇综述,本文并未报告单一实验数据,而是整合了从分子结构、转运机制、酶学调控到器官间代谢环路的大量研究。其亮点在于:一方面系统绘制了谷氨酰胺在胞质、线粒体及细胞器间的流向图(图1),厘清 SLC1A5、GLS、GLUD、SLC25A11、SLC7A11 等节点的功能;另一方面将基础代谢与临床前/临床证据衔接,涵盖代谢抑制剂、联合疗法,以及代谢影像和单细胞分析等新兴技术。这种“从原子到整体”的框架,使读者能同时把握分子细节和系统生理。
应用意义:靶向谷氨酰胺代谢的治疗前景
由于肿瘤、神经退行性疾病和代谢紊乱中都存在谷氨酰胺代谢重编程,该通路成为极具潜力的治疗靶标。针对转运体(如 SLC1A5/ASCT2)和代谢酶(如 GLS、GDH)的抑制剂正在被评估;联合策略——例如将谷氨酰胺阻断与免疫治疗、放化疗或抗氧化干预配合——有望克服肿瘤耐药。此外,代谢成像与单细胞分析技术让研究者能在体、动态地观测谷氨酰胺流,为精准分型和疗效监测提供工具。
总体而言,这篇综述表明:谷氨酰胺既是维持生命活动的“代谢货币”,也是疾病状态下可被干预的“阿喀琉斯之踵”。从条件必需营养到抗癌靶点,对它的深入理解正推动下一代代谢疗法走向临床。
本文图片转载自 PMC 开放获取全文,仅供学习参考,请以原文为准。