原文:Neuronal SPI1 suppression enhances axonal regeneration after spinal cord injury through Rassf10 downregulation.
期刊:Burns & trauma(影响因子 11.0) |
PubMed | PMC 全文(含 PDF)
关键图表
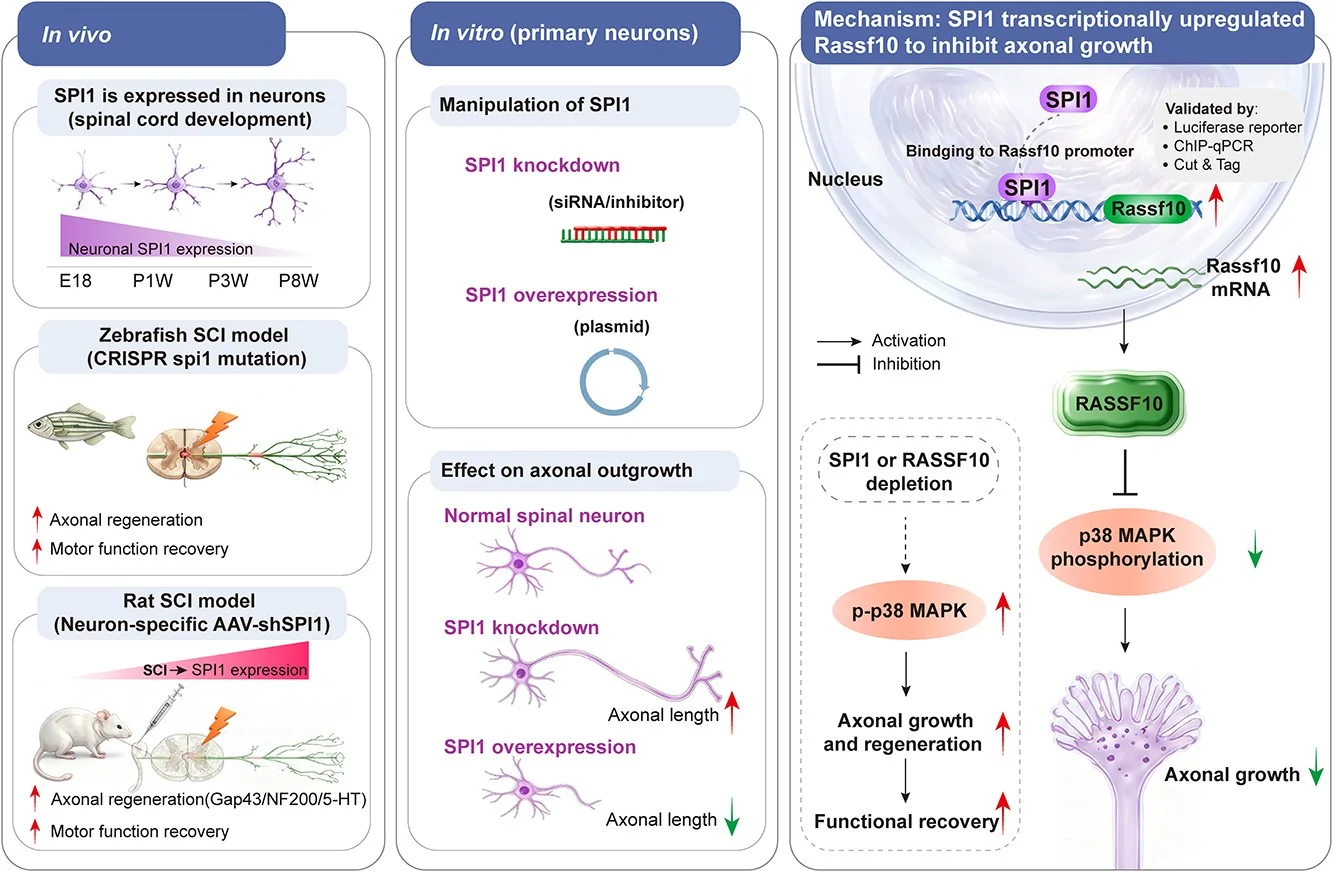 Graphical Abstract Graphical Abstract: 图文摘要:
脊髓损伤(spinal cord injury, SCI)后,中枢神经系统轴突往往难以自发再生,其中一个关键障碍来自脊髓神经元内在的抑制性特性。长期以来,科研人员一直在寻找能够“松开”这种内在刹车、让受损轴突重新生长的分子开关。近日,一项发表于《Burns & Trauma》(影响因子 11.0)的研究给出了新答案:一个在免疫细胞中大名鼎鼎的转录因子 SPI1(又称 PU.1),在神经元里竟扮演着抑制轴突再生的“反派”角色;而抑制它,则能通过一条全新的 SPI1–Rassf10–p38 MAPK 轴显著促进轴突再生与运动功能恢复。
研究背景:为什么关注神经元里的 SPI1?
SPI1(PU.1)是髓系细胞分化和发育的“主控”转录因子,过去绝大多数研究都集中在小胶质细胞、巨噬细胞等免疫细胞中。然而,近年单细胞测序数据显示,脊髓神经元中也明确表达 SPI1,这提示它可能在神经系统中具有超越免疫调控的“非免疫功能”。
研究团队在前期工作中观察到:在大鼠脊髓发育过程中,神经元内的 SPI1 表达呈现动态变化——胚胎期主要定位于细胞核,出生后逐渐下降并向细胞质转移;而在脊髓损伤后,神经元 SPI1 表达明显上调,并伴随蛋白向核内转位。这一现象让作者提出假设:SPI1 可能是发育过程中轴突生长的负向调控因子,并在损伤后被重新激活以限制再生。
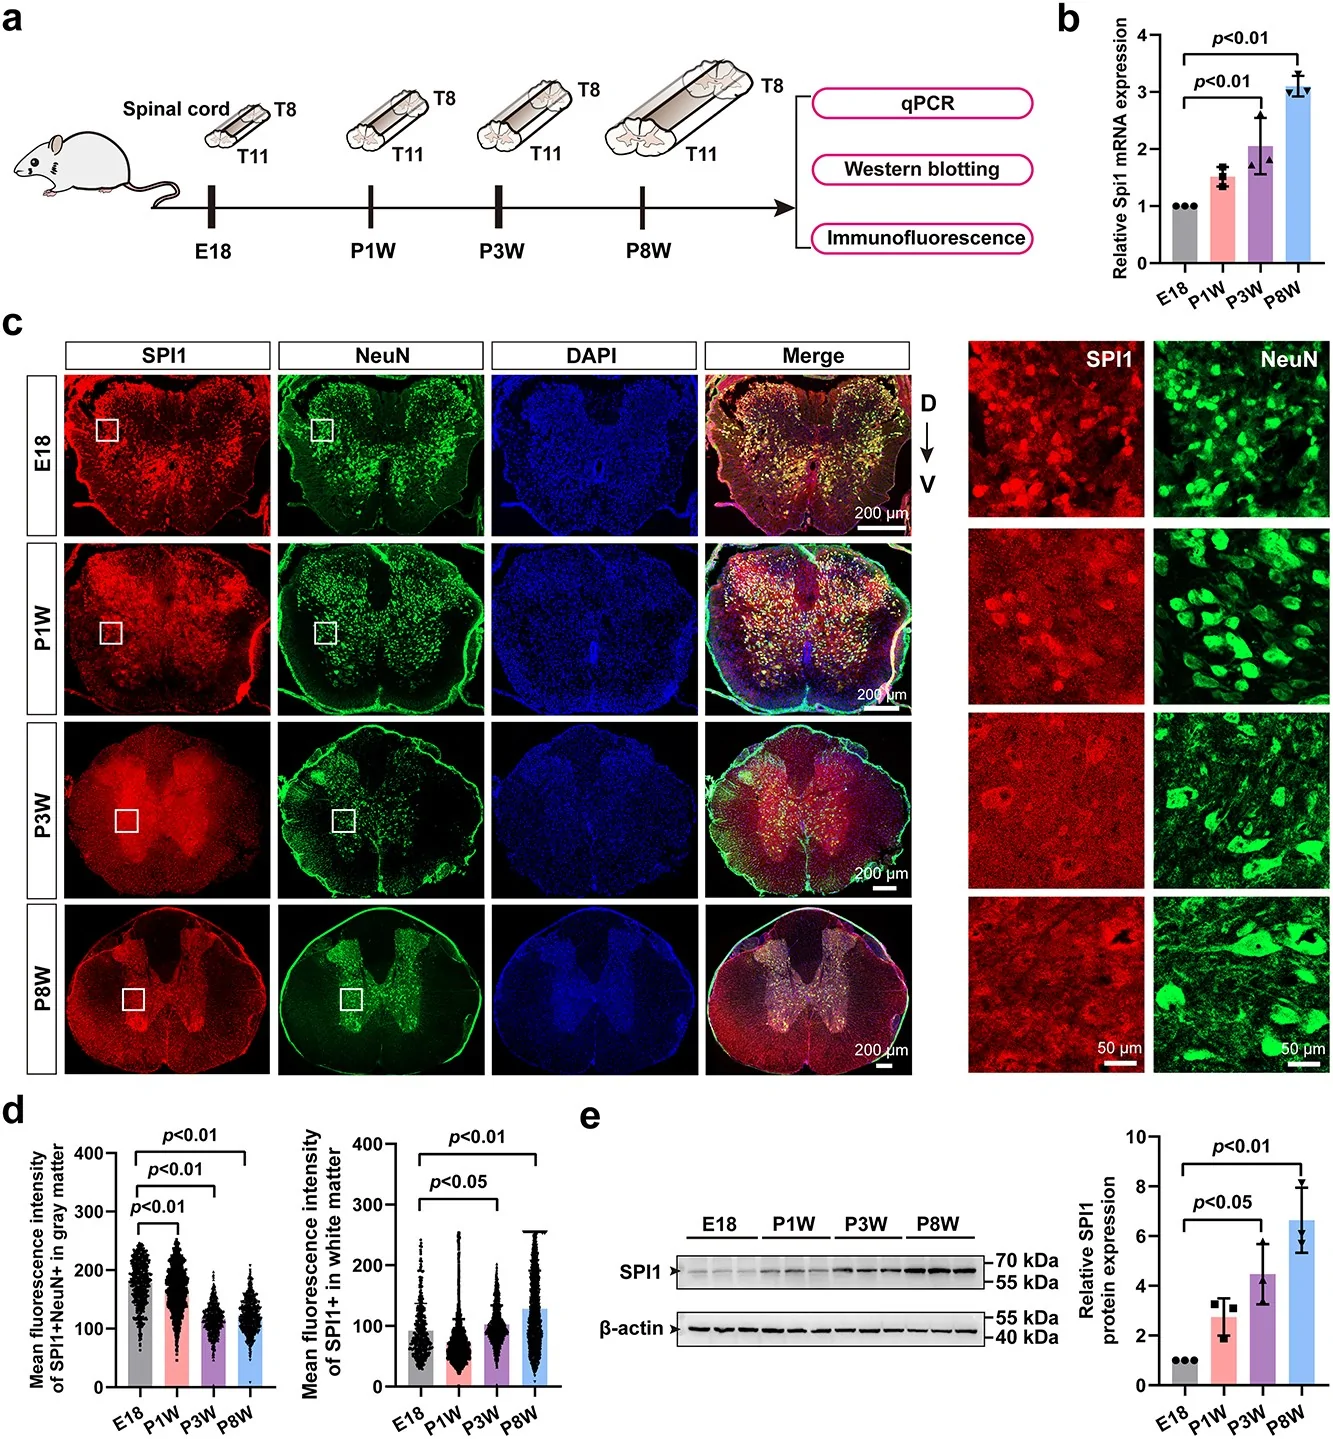 Figure 1 SPI1 在脊髓发育过程中的动态表达。(a) 实验时间线,说明在 E18、出生后第 1 周(P1W)、出生后第 3 周(P3W)和出生后第 8 周(P8W)收集大鼠脊髓组织用于 SPI1 表达分析。取 T8-T11 节段组织进行 qPCR 分析 mRNA、Western blotting 分析蛋白质,以及 IF 观察 SPI1 蛋白定位。(b) E18、P1W、P3W 和 P8W 时 SPI1 表达的 qPCR 分析。数据以平均值±标准差表示,n=3 个生物学重复。采用单因素方差分析(One-way ANOVA)及 Tukey 事后检验进行分析(P<0.05)。图中标出了 P 值。(c) E18、P1W、P3W 和 P8W 脊髓组织中 SPI1 和 NeuN 的免疫组织化学(IHC)染色。左图为代表性 IHC 结果(比例尺:200 μm);右图为左图白框区域的放大视图(比例尺:50 μm),D,背侧;V,腹侧。(d) (c) 的统计分析。数据以平均值±标准差表示。采用单因素方差分析(One-way ANOVA)及 Bonferroni 事后检验进行分析(P<0.05)。图中显示了 P 值。(e) E18、P1W、P3W 和 P8W 时 SPI1 蛋白表达。左图为代表性 WB 结果,右图为统计分析。数据以平均值±标准差表示,n=3 个生物学重复。采用单因素方差分析(One-way ANOVA)及 Tukey 事后检验进行分析(P<0.05)。图中显示了 P 值
轴突生长对中枢神经系统发育至关重要,也是损伤后神经功能重建的核心。尽管 c-Jun 等转录因子已被证实参与轴突生长调控,但发现新的调控分子,仍可能为神经修复带来全新治疗策略。正是在这一背景下,研究团队系统解析了 SPI1 在脊髓神经元中的功能与机制。
核心发现:SPI1 是轴突再生的“刹车”,抑制它可促进修复
为了验证 SPI1 的功能,作者在原代培养的大鼠脊髓神经元中进行了干预实验。结果显示:敲低 SPI1 能显著促进轴突向外生长,而过表达 SPI1 则明显缩短轴突长度。这说明在神经元中,SPI1 本身就是一个限制轴突延伸的负调控因子。
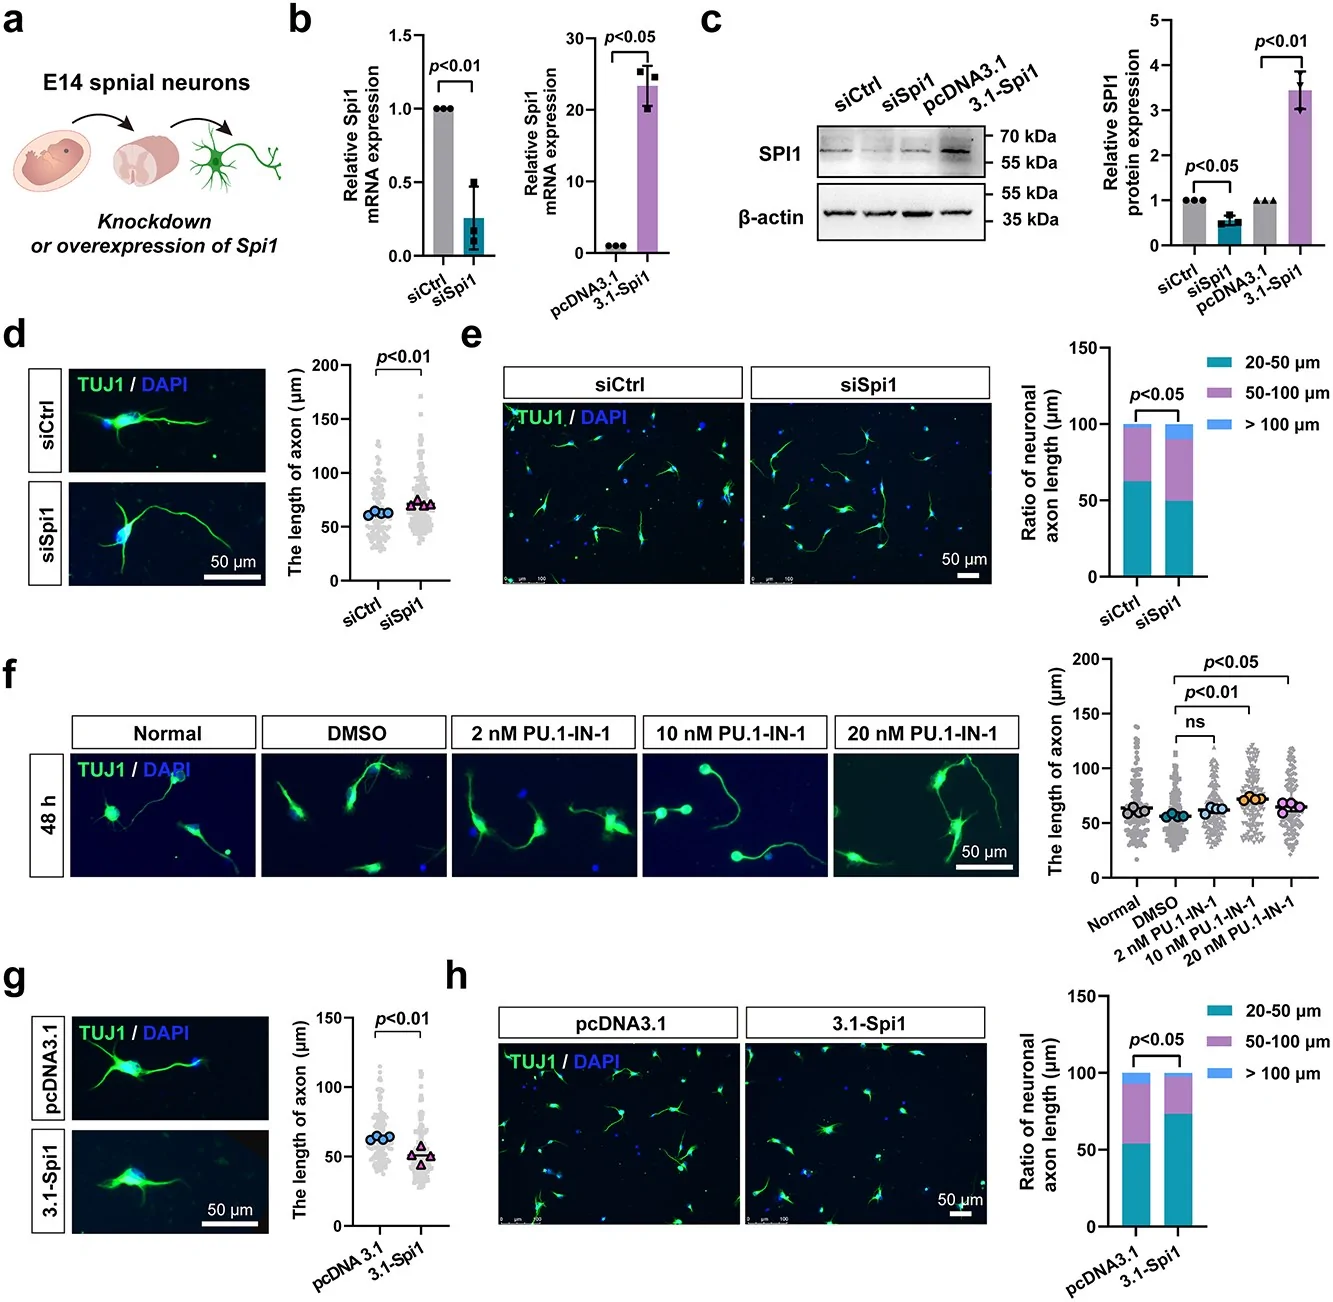 Figure 2 干预 SPI1 表达在体外显著影响轴突生长。(a) 研究 SPI1 对 E14 脊髓神经元影响的实验设置示意图。(b) 左图:神经元经 siRNA 处理后 SPI1 的 mRNA 表达。右图:神经元经过表达处理后 SPI1 的 mRNA 表达。数据以平均值±标准差表示,n=3 个生物学重复。采用非配对 Student t 检验比较两组(vs siCtrl/pcDNA3.1)。图中显示了 P 值。(c) 神经元经 siRNA 或过表达处理后 SPI1 的蛋白表达。左图:代表性 WB 结果;右图:统计分析。数据以平均值±标准差表示,n=3 个生物学重复。采用非配对 Student t 检验比较两组(vs siCtrl/pcDNA3.1)。图中显示了 P 值。(d) SPI1 siRNA 对轴突生长的影响。左图:用 Tuj1 抗体染色的代表性 IF 图像,比例尺为 50 μm。右图:统计分析。数据以平均值±标准差表示,n=4 个生物学重复,灰点代表 120 个神经元。采用非配对 Student t 检验比较两组(vs siCtrl)。图中显示了 P 值。(e) SPI1 siRNA 对神经元轴突长度比例的影响。左图为神经元经 SPI1 siRNA 处理 48 小时后 Tuj1 的代表性 IF 图像,比例尺为 50 μm。右图:统计分析。(f) PU.1-IN-1(SPI1 特异性抑制剂)对轴突生长的影响。左图为神经元经 PU.1-IN-1(2、10、20 nM)处理 48 小时后 Tuj1 的代表性 IF 图像,比例尺为 50 μm。右图:统计分析。数据以平均值±标准差表示,n=4 个生物学重复,灰点代表 120 个神经元。数据采用单因素方差分析(One-way ANOVA)及 Tukey 事后检验进行分析(P<0.05)。图中显示了 P 值。(g) SPI1 过表达对轴突生长的影响。左图:用 Tuj1 抗体染色的代表性 IF 图像,比例尺为 50 μm。右图:统计分析。数据以平均值±标准差表示,n=4 个生物学重复,灰点代表 120 个神经元。采用非配对 Student t 检验比较两组(vs siCtrl)。图中显示了 P 值。(h) SPI1 过表达对神经元轴突长度比例的影响。左图为神经元经 SPI1 siRNA 处理 48 小时后 Tuj1 的代表性 IF 图像,比例尺为 50 μm。右图:统计分析
更重要的是,这种效应在活体动物中也得到验证。研究利用 CRISPR/Cas9 技术在斑马鱼中突变 spi1 基因,并建立脊髓损伤模型;同时在成年大鼠 T10 半切损伤模型中,通过神经元特异性 AAV9-shRNA 递送系统敲低脊髓神经元中的 SPI1。结果一致表明:抑制 SPI1 后,轴突再生标志物 GAP43、神经丝蛋白 NF200 以及 5-羟色胺(5-HT)能神经纤维的表达均显著增加,动物运动功能也获得更好恢复。
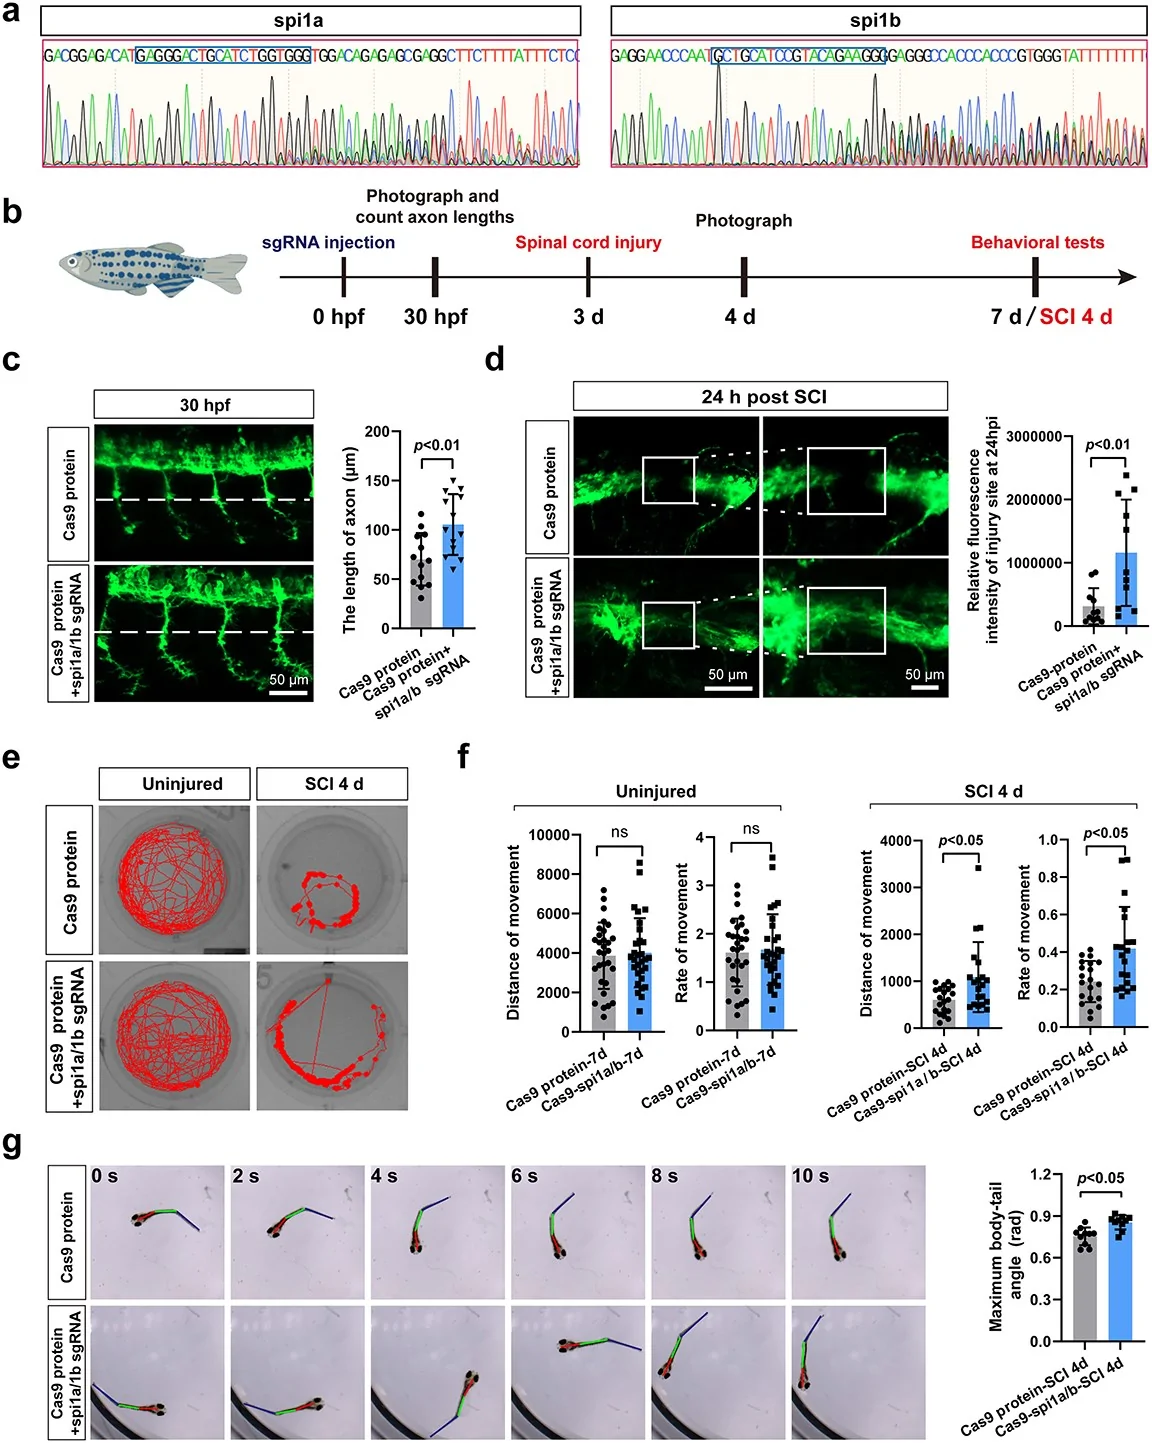 Figure 3 斑马鱼中 spi1 表达突变显著促进脊髓损伤后轴突生长和功能恢复 (a) spi1a 和 spi1b sgRNA 有效性的验证。左图:spi1a PCR 产物的测序峰图;右图:spi1b PCR 产物的测序峰图。(b) 描述操作程序的实验时间线。(c) 利用 CRISPR/Cas9 技术在受精后 30 小时(hpf)spi1 突变对斑马鱼轴突生长的影响。左图:代表性图像(比例尺:50 μm);右图:统计分析。数据以平均值±标准差表示,每组 n=13 条斑马鱼。采用非配对 Student t 检验比较两组(vs Cas9 蛋白)。图中标出了 P 值。(d) 脊髓损伤后 24 小时 spi1 突变对斑马鱼轴突生长的影响。左图:代表性图像(比例尺:50 μm);右图:统计分析。数据以平均值±标准差表示,每组 n=11 条斑马鱼。采用非配对 Student t 检验比较两组(vs Cas9 蛋白)。图中标出了 P 值。(e) spi1 敲低后受精后 7 天(dpf)或脊髓损伤后 4 天斑马鱼行为轨迹(红线)的代表性图。(f) 左图:spi1 突变后 7 dpf 未受伤斑马鱼幼鱼 10 分钟内的总移动距离和速度,每组 n=30 条斑马鱼。右图:spi1 突变后受伤斑马鱼(SCI 4 d)幼鱼在 7 dpf 时 10 分钟内的总移动距离和速度,每组 n=20 条斑马鱼。数据以平均值±标准差表示。采用非配对 Student t 检验比较两组(vs ctrl)。图中标出了 P 值。(g) 左图:脊髓损伤后 4 天,Cas9 蛋白对照组和 Cas9 蛋白+spi1a/1b sgRNA 组在 10 秒期间(0、2、4、6、8、10 秒)游泳运动的代表性连续图像。右图:逃逸反应期间最大体尾角(弧度)的量化。数据以平均值±标准差表示。采用非配对 Student t 检验比较两组(vs Cas9 蛋白)。图中标出了 P 值。SCI 脊髓损伤
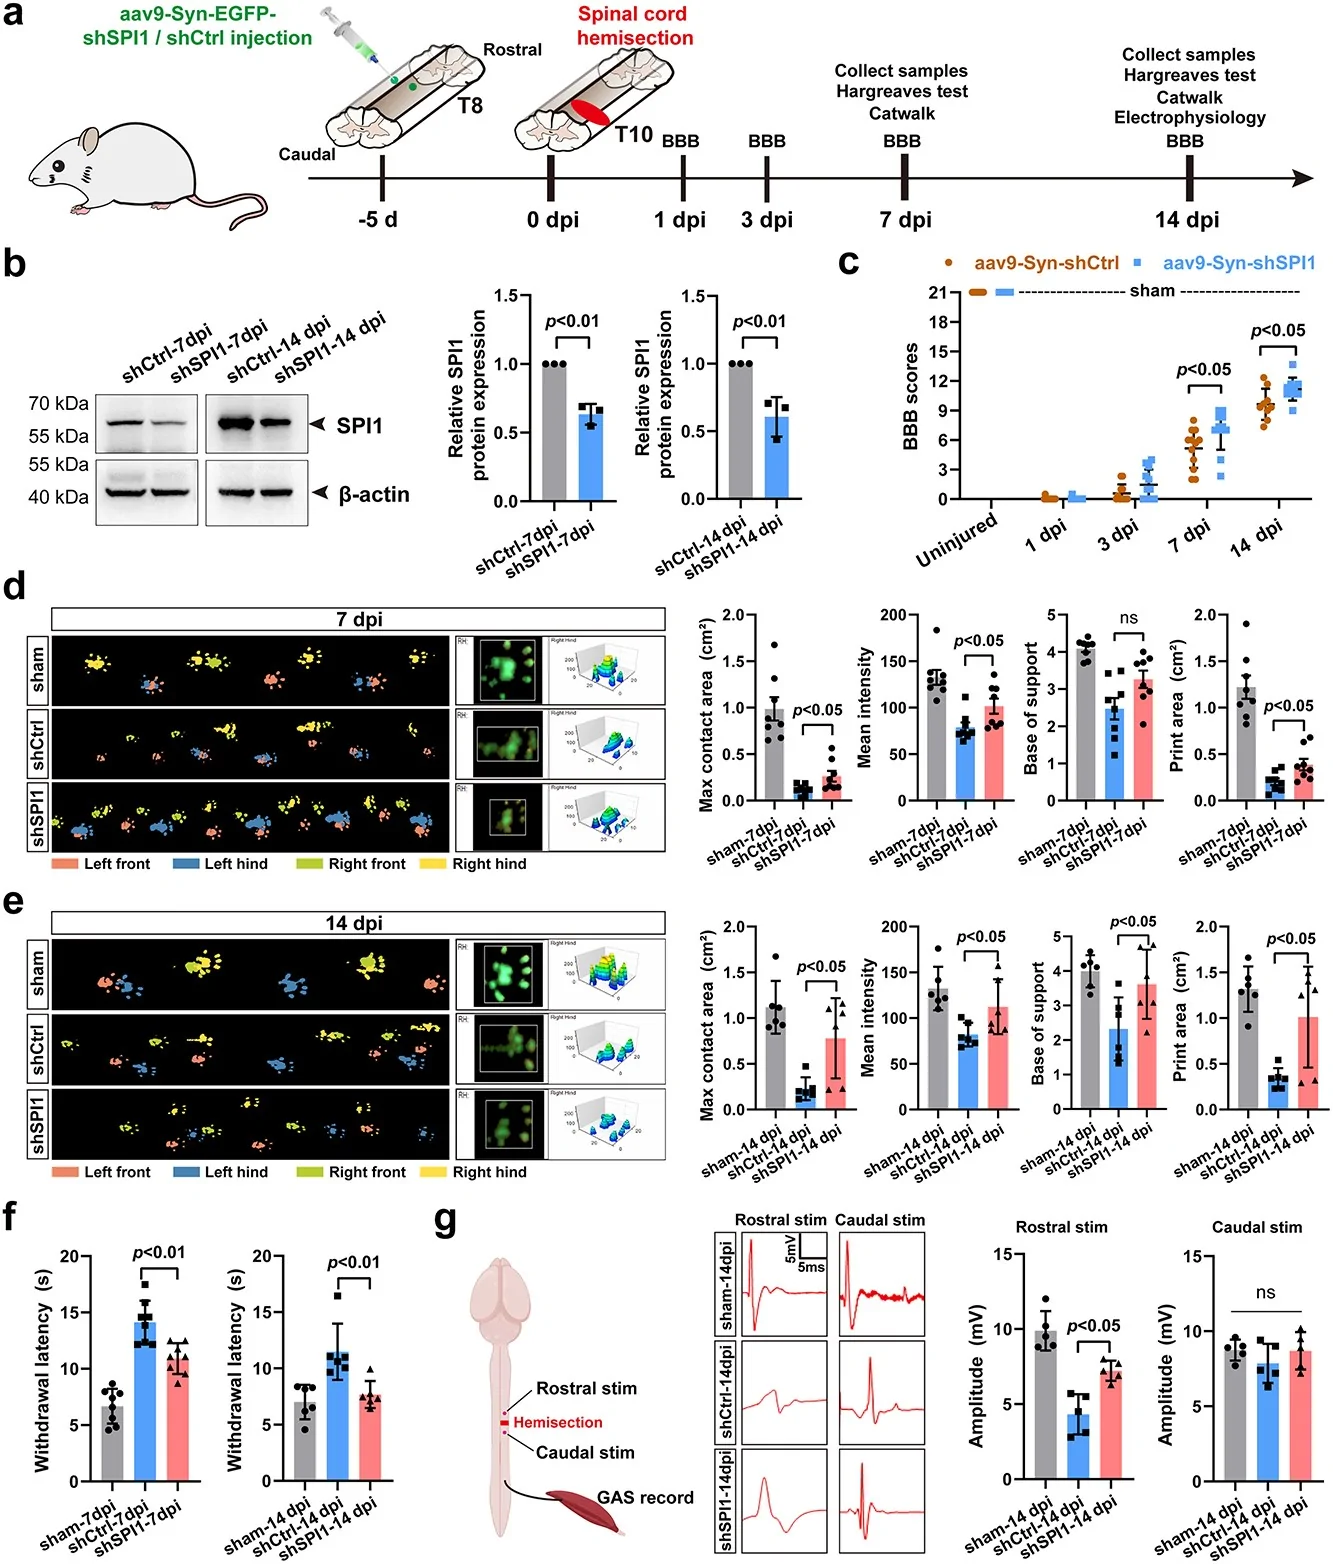 Figure 4 大鼠神经元中 SPI1 敲低促进脊髓损伤后功能恢复 (a) 脊髓半切及 AAV9-Syn-EGFP-shCtrl 或 shSPI1 病毒注射的实验时间线示意图。在胸段 8(T8)水平进行注射,随后在 T10 进行半切。时间线指示术后样本收集和行为测试。(b) SPI1 敲低效率分析。左图:代表性 Western blot 图像,显示半切后损伤后 7 天和 14 天(dpi)脊髓组织中 SPI1 蛋白水平。右图:以 β-actin 标准化的相对 SPI1 蛋白表达量化。数据以平均值±标准差表示,n=3 个生物学重复。采用非配对 Student t 检验比较两组(vs shCtrl)。图中显示了 P 值。(c) 损伤后不同时间点接受 AAV9-Syn-EGFP-shCtrl 或 shSPI1 治疗大鼠的 BBB 评分。数据以平均值±标准差表示,每组 n=9–12 只大鼠。统计学显著性采用双因素方差分析(two-way ANOVA)及 Bonferroni 事后检验确定(P<0.05)。图中显示了 P 值。(d) 脊髓半切后 7 dpi 的 Catwalk 步态分析。左图:Catwalk 系统捕获的假手术组、shCtrl-7dpi 和 shSPI1-7dpi 组足印代表性序列。右图:步态参数量化,包括最大接触面积(cm2)、平均强度(足压)、支撑基底(外侧足印间距离)和印迹面积(cm2)。数据以平均值±标准差表示,每组 n=8 只大鼠。统计学显著性采用非配对 Student t 检验评估;图中显示了 P 值。(e) 脊髓半切后 14 dpi 的 Catwalk 步态分析。左图:假手术组、shCtrl-14dpi 和 shSPI1-14dpi 组足印代表性序列。右图:关键步态参数总结:最大接触面积、平均强度、支撑基底和印迹面积。数据以平均值±标准差表示,每组 n=6 只大鼠。统计学显著性采用非配对 t 检验评估;图中显示了 P 值。(f) PWL(秒)作为热痛阈值的测量,用于 7 dpi(左图,每组 n=8 只大鼠)和 14 dpi(右图,每组 n=6 只大鼠)接受 shCtrl 和 shSPI1 治疗的大鼠。数据以平均值±标准差表示。采用非配对 Student t 检验比较两组(vs shCtrl)。图中显示了 P 值。(g) 14 dpi 脊髓功能的电生理评估。左图:头端和尾端刺激及 GAS 肌记录的实验设置示意图。中图:假手术-14dpi、shCtrl-14dpi 和 shSPI1-14dpi 组在头端和尾端刺激后从 GAS 肌记录的诱发电位代表性轨迹。右图:头端(左)和尾端(右)刺激后诱发电位幅值的量化。数据以平均值±标准差表示,每组 n=5 只大鼠。统计学显著性采用单因素方差分析评估;图中显示了 P 值
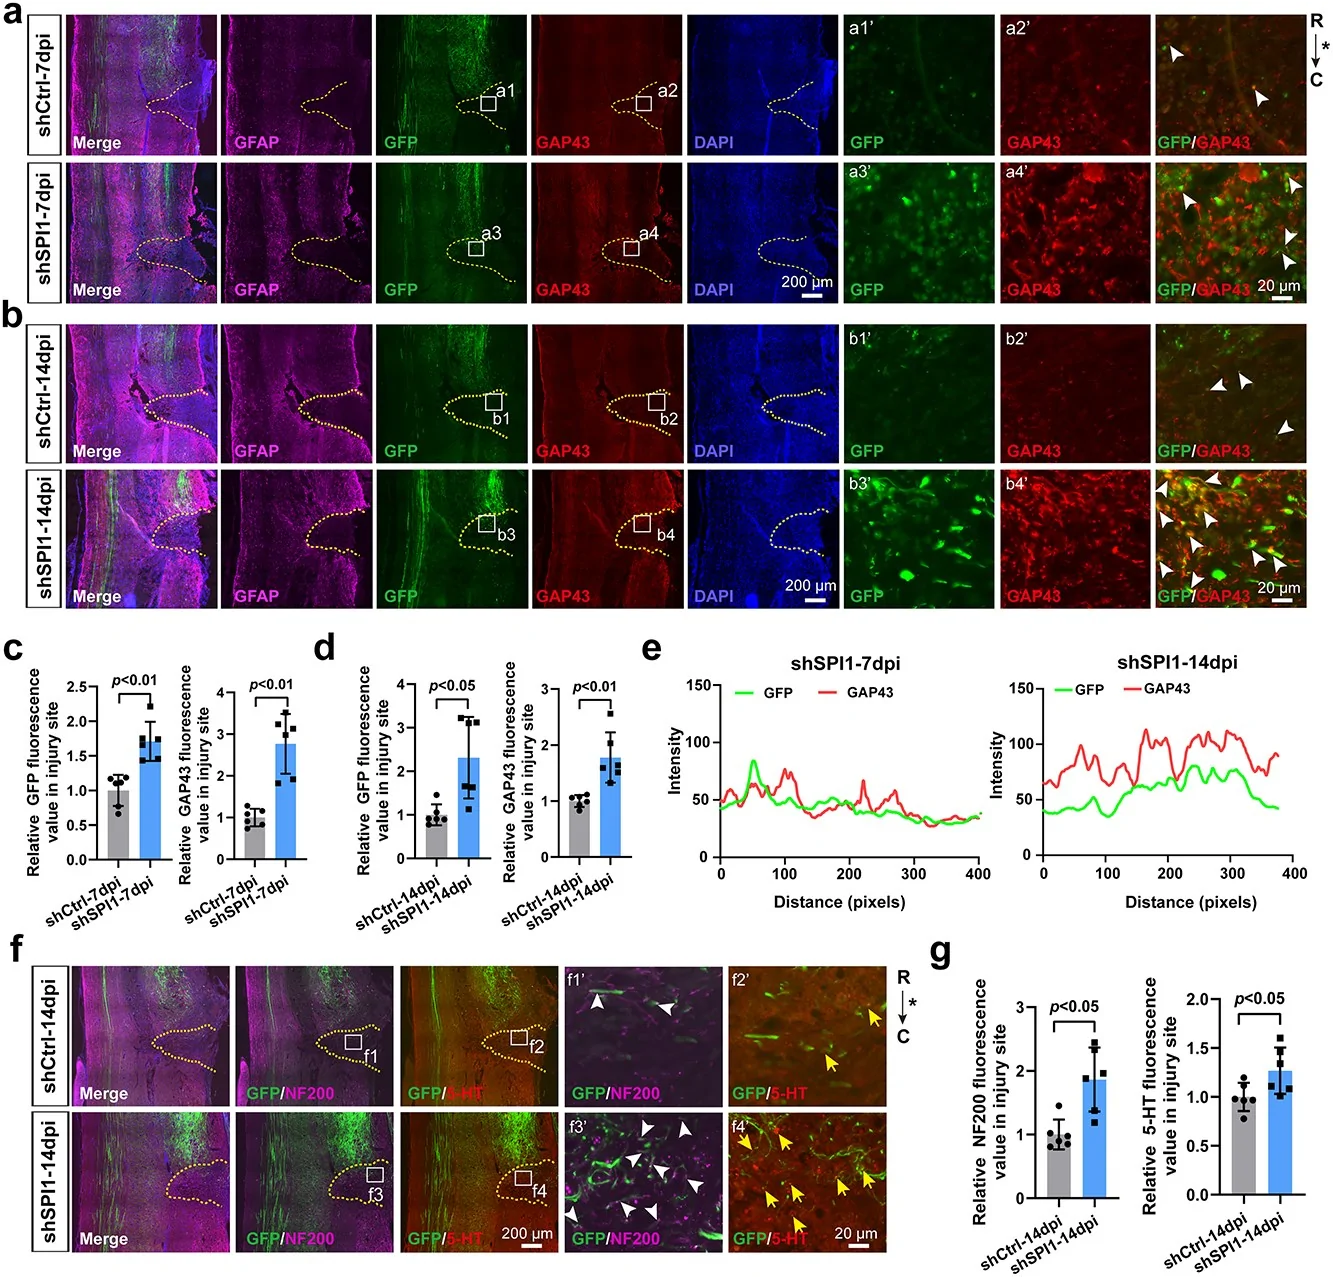 Figure 5 大鼠神经元中 SPI1 敲低促进脊髓损伤后轴突生长 (a) 7 dpi 时 GFAP、GFP、GAP43 和 DAPI 染色的代表性图像。GFAP 表达标记损伤边缘,显示损伤部位 GAP43 阳性和 GFP 阳性细胞的分布。虚线划定损伤区域。图 a1–a4 和 a1′–a4′ 显示方框区域的放大视图。箭头突出 GFP/GAP43 双阳性细胞。R,头端;C,尾端;星号表示损伤侧。比例尺:200 μm(低倍),20 μm(高倍)。(b) 14 dpi 时 GFAP、GFP、GAP43 和 DAPI 染色的代表性图像。GFAP 表达标记损伤边缘,显示损伤部位 GAP43 和 GFP 的分布。虚线划定损伤区域。图 b1–b4 和 b1′–b4′ 显示方框区域的放大视图。箭头突出 GFP/GAP43 双阳性细胞。比例尺:200 μm(低倍),20 μm(高倍)。(c) 7 dpi 时损伤部位相对 GFP 和 GAP43 荧光强度的统计分析。数据以平均值±标准差表示,每组 n=6 只大鼠。采用非配对 Student t 检验比较两组(vs shCtrl)。图中显示了 P 值。(d) 14 dpi 时损伤部位相对 GFP 和 GAP43 荧光强度的统计分析。数据以平均值±标准差表示,每组 n=6 只大鼠。采用非配对 Student t 检验比较两组(vs shCtrl)。图中显示了 P 值。(e) shSPI1 组在 7 dpi 和 14 dpi 时损伤部位 GFP 和 GAP43 的荧光强度线剖面图。(f) 14 dpi 时 GFP、NF200、5-HT 和 DAPI(合并)染色的代表性图像。损伤部位 NF200 阳性纤维和 5-HT 阳性纤维的分布。虚线勾勒损伤区域。图 f1–f4 和 f1′–f4′ 显示方框区域的放大视图。白色箭头突出 GFP/NF200 双阳性纤维,黄色箭头突出 GFP/5-HT 双阳性纤维。R,头端;C,尾端;星号表示损伤侧。比例尺:200 μm(低倍),20 μm(高倍)。(g) 14 dpi 时损伤部位相对 NF200 和 5-HT 荧光强度的统计分析。数据以平均值±标准差表示,每组 n=6 只大鼠。采用非配对 Student t 检验比较两组(vs shCtrl)。图中显示了 P 值
在机制层面,研究通过 RNA-seq 筛选、荧光素酶报告基因实验、ChIP-qPCR 以及 Cut&Tag 等多组学手段,鉴定出 Rassf10 是 SPI1 的直接靶基因。SPI1 能够直接结合到 Rassf10 启动子区域,转录激活其表达;而 Rassf10 的上调会抑制 p38 MAPK 信号通路——具体表现为降低 p-p38(磷酸化 p38)水平,从而阻碍轴突生长。相反,当 SPI1 或 Rassf10 被清除时,p-p38 水平上升,轴突生长增强;而使用 p38 抑制剂则能取消这一促生长效应。
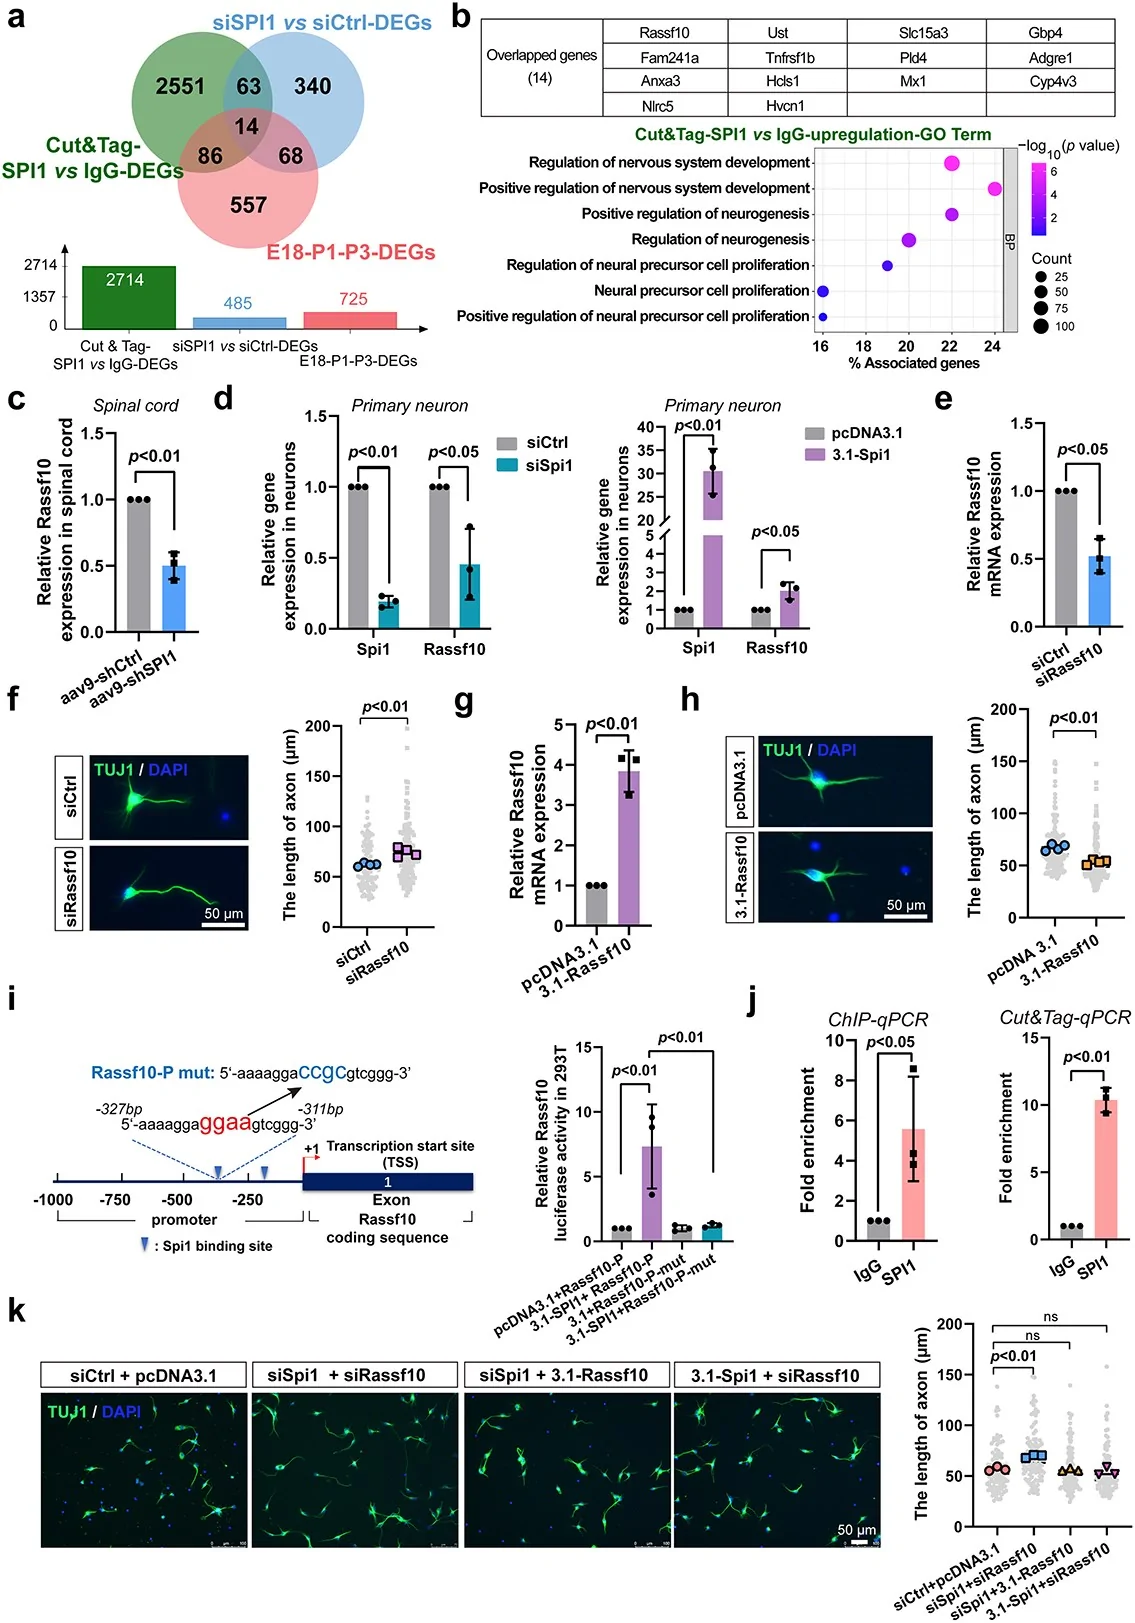 Figure 6 SPI1 通过 Rassf10 调控轴突生长 (a) 维恩图显示三个比较组差异表达基因(DEGs)的重叠:siSPI1 vs siCtrl-DEGs(下调基因,SPI1 敲低 vs 对照)、Cut&Tag-SPI1 vs IgG-DEGs(上调基因,SPI1 染色质结合 vs IgG 对照)和 E18-P1-P3-DEGs(上调基因,发育阶段比较:E18 vs P1 vs P3)。下方条形图量化了每个比较组的独特 DEG 数量。(b) 上图:列出三个比较组中鉴定出的 14 个重叠基因的表格。下图:点图显示 cut&tag-SPI1 vs IgG 比较中上调基因的 GO 富集分析,重点关注神经系统相关生物学过程。(c) 大鼠经 aav9-syn-EGFP-shSPI1 或 shCtrl 处理 21 天后 Rassf10 表达的 qPCR 检测。数据以平均值±标准差表示,n=3 个生物学重复。采用非配对 Student t 检验比较两组(vs shCtrl)。图中显示了 P 值。(d) 左图:神经元经 SPI1 siRNA 处理后 Rassf10 的表达。右图:神经元经 SPI1 过表达处理后 Rassf10 的表达。数据以平均值±标准差表示,n=3 个生物学重复。采用非配对 Student t 检验比较两组(vs siCtrl/pcDNA3.1)。图中显示了 P 值。(e) 神经元中 Rassf10 敲低效率的 qPCR 检测。数据以平均值±标准差表示,n=3 个生物学重复。采用非配对 Student t 检验比较两组(vs siCtrl)。图中显示了 P 值。(f) Rassf10 siRNA 对轴突生长的影响。左图:用 Tuj1 抗体染色的代表性 IF 图像,比例尺为 50 μm。右图:统计分析。数据以平均值±标准差表示,n=4 个生物学重复,灰点代表 120 个神经元。采用非配对 Student t 检验比较两组(vs siCtrl)。图中显示了 P 值。(g) 神经元中 Rassf10 过表达效率的 qPCR 检测。数据以平均值±标准差表示,n=3 个生物学重复。采用非配对 Student t 检验比较两组(vs pcDNA3.1)。图中显示了 P 值。(h) Rassf10 过表达对轴突生长的影响。左图:用 Tuj1 抗体染色的代表性 IF 图像,比例尺为 50 μm。右图:统计分析。数据以平均值±标准差表示,n=4 个生物学重复,灰点代表 120 个神经元。采用非配对 Student t 检验比较两组(vs siCtrl)。图中显示了 P 值。(i) 左图:预测的 Rassf10 基因启动子 −1000 bp 至 +1 bp 内 SPI1 转录因子可能结合位点的示意图。右图:荧光素酶报告基因分析结果。(j) 左图:ChIP-qPCR 分析的代表性结果。右图:Cut&taq-qPCR 分析的代表性结果。抗 IgG/SPI1 抗体免疫沉淀 IgG/SPI1-DNA 复合物;使用 Rassf10 特异性引物通过实时定量 PCR(qPCR)鉴定 IgG/SPI1 结合的 DNA 区域,IgG 用作免疫沉淀对照。数据以平均值±标准差表示,n=3 个生物学重复。采用非配对 Student t 检验比较两组(vs IgG)。(k) siCtrl+pcDNA3.1、siSpi1+siRassf10、siSPI1+3.1-Rassf10 和 3.1-SPI1+siRassf10 处理对轴突生长的影响。左图:用 Tuj1 抗体染色的代表性 IF 图像,比例尺为 50 μm。右图:统计分析。数据以平均值±标准差表示,n=3 个生物学重复,灰点代表 90 个神经元。采用非配对 Student t 检验比较两组(vs siCtrl+pcDNA3.1)。“Ns”表示无显著性
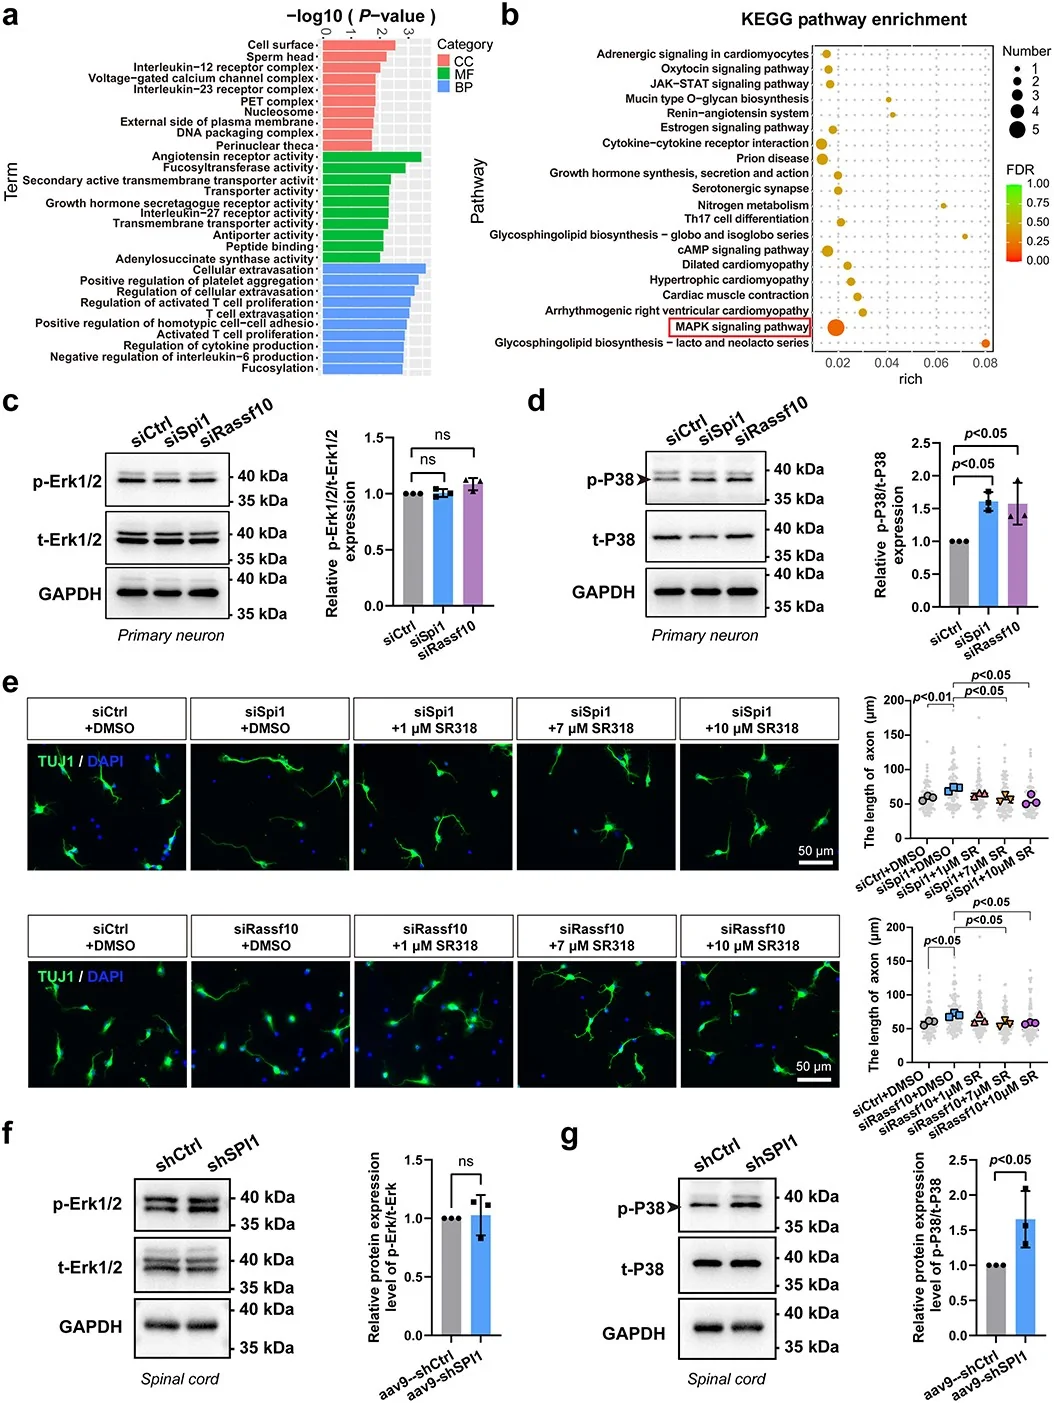 Figure 7 p38 MAPK 信号通路参与 SPI1-Rassf10 轴调控的轴突生长 (a) 神经元经 siSPI1 处理后上调基因的 GO 富集分析中的 GO 条目。(b) 神经元经 siSPI1 处理后上调基因的 KEGG 分析。(c) 神经元经 Spi1/Rassf10 siRNA 处理后 p-Erk1/2 和总 Erk1/2 的蛋白表达。左图:代表性 Western blot 结果;右图:统计分析。数据以平均值±标准差表示,n=3 个生物学重复。采用非配对 Student t 检验比较两组(vs siCtrl)。“Ns”表示无显著差异。(d) 神经元经 Spi1/Rassf10 siRNA 处理后 p-P38 MAPK 和总 P38 MAPK 的蛋白表达。左图:代表性 Western blot 结果;右图:统计分析。数据以平均值±标准差表示,n=3 个生物学重复。采用非配对 Student t 检验比较两组(vs siCtrl)。图中显示了 P 值。(e) SR318(p-P38 MAPK 特异性抑制剂)对 Spi1/Rassf10 siRNA 处理后轴突生长的影响。左图:神经元经 SR318(1、7 和 10 μM)处理 48 小时后 Tuj1 的代表性 IF 图像。比例尺:50 μm。右图:统计分析。数据以平均值±标准差表示,n=3 个生物学重复。灰点代表 90 个神经元。采用非配对 Student t 检验比较两组(vs siCtrl + DMSO)。图中显示了 P 值。(f) 大鼠经 aav9-syn-EGFP-shSPI1/shCtrl 处理 7 dpi 后 p-Erk1/2 和总 Erk1/2 的蛋白表达。左图:代表性 Western blot 结果;右图:统计分析。数据以平均值±标准差表示,n=3 个生物学重复。采用非配对 Student t 检验比较两组(vs shCtrl)。“Ns”表示无显著差异。(g) 大鼠经 aav9-syn-EGFP-shSPI1/shCtrl 处理 7 dpi 后 p-P38 MAPK 和总 P38 MAPK 的蛋白表达。左图:代表性 Western blot 结果;右图:统计分析。数据以平均值±标准差表示,n=3 个生物学重复。采用非配对 Student t 检验比较两组(vs shCtrl)。图中显示了 P 值
综上,研究描绘出一条清晰的信号轴:脊髓损伤后神经元 SPI1 上调 → 转录激活 Rassf10 → 抑制 p38 MAPK 磷酸化 → 限制轴突再生;而靶向抑制 SPI1,则可解除该抑制,促进轴突再生与功能恢复。
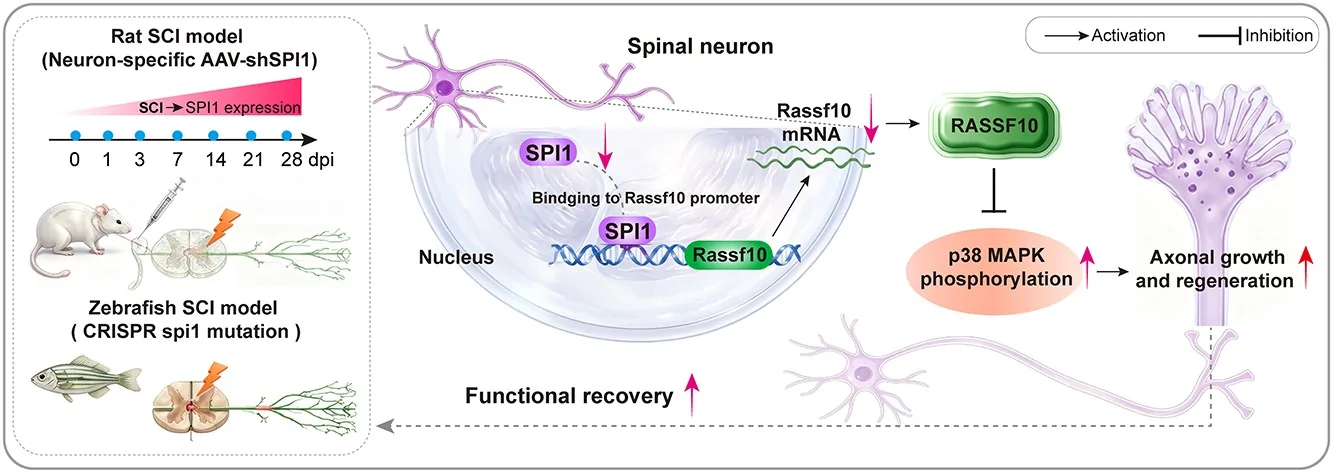 Figure 8 SPI1 在脊髓损伤后轴突再生中作用的示意图。脊髓损伤后,SPI1 表达在损伤后 0 至 28 天动态上调。下调 SPI1 表达显著增强大鼠和斑马鱼脊髓损伤后的功能恢复。SPI1 直接调控神经元中 Rassf10 的表达,进而调节 p38 MAPK 信号通路。该图说明了 SPI1 通过 Rassf10 和 p38 MAPK 轴负向调控轴突发生的分子机制,突出了靶向该通路增强神经修复的治疗潜力。(本图的原始图像材料由 GPT image 2 模型和豆包生成,并使用 Adobe Illustrator 2025 进一步编辑。)SCI 脊髓损伤
方法亮点:跨物种、多组学与精准递送的结合
这项研究在方法学上具有多重亮点。首先,它实现了跨物种验证:从体外原代大鼠脊髓神经元、到 CRISPR/Cas9 编辑的斑马鱼幼虫脊髓损伤模型,再到成年大鼠 T10 半切模型并配合神经元特异性 AAV9-Syn-shRNA 立体定位注射,形成了从细胞到整体、从低等到哺乳动物的完整证据链。
其次,在靶基因鉴定上,作者没有依赖单一筛选,而是将三组数据取交集:发育过程中与 SPI1 表达相关的上调基因、Cut&Tag 鉴定的 SPI1 结合基因、以及 SPI1 沉默后下调的基因。这种“三重过滤”策略显著提高了 Rassf10 作为直接靶点的可信度,并通过荧光素酶报告、ChIP-qPCR 和 Cut&Tag 实验逐一验证。
此外,研究还结合了公共单细胞 RNA-seq 数据(GEO 数据库 GSE172167),利用 Seurat 等工具重新分析损伤小鼠脊髓中各细胞类群的 SPI1 表达,确认其在神经元中的存在;同时在行为学评估中采用 BBB 评分、EthoVision XT 自动追踪以及高速摄像分析斑马鱼尾摆幅度,保证了功能评价的客观性与双盲性。
应用意义:为脊髓损伤修复提供新靶点
该研究的发现具有重要转化潜力。传统上,SPI1 被视为免疫细胞主调控因子,而本研究重新定义了它的“双重身份”:既是免疫反应调节者,也是神经元可塑性的抑制因子。SPI1–Rassf10 轴的阐明,为脊髓损伤后神经修复提供了一个全新的治疗靶点。
通过神经元特异性敲低 SPI1,研究在动物模型中实现了轴突再生标志物上升和运动功能改善,且未依赖外源细胞移植或复杂生物材料,仅通过病毒载体介导的基因干预即获得效果。这意味着未来或可开发针对 SPI1 或其下游 Rassf10/p38 通路的小分子药物、反义寡核苷酸或基因疗法,用于促进中枢神经再生。
当然,研究仍停留在临床前阶段。从啮齿类与斑马鱼模型到人类患者,还有递送效率、长期安全性、免疫副作用(因 SPI1 也表达于髓系细胞)等问题需要解决。但毫无疑问,这项工作为理解神经元内在再生障碍提供了新视角,也为“让断掉的神经重新长起来”这一医学难题带来了新的分子线索。
论文信息: 题目 “Neuronal SPI1 suppression enhances axonal regeneration after spinal cord injury through Rassf10 downregulation”,发表于 Burns & Trauma。
本文图片转载自 PMC 开放获取全文,仅供学习参考,请以原文为准。