文章中心
了解、体验、感悟、分享——汇聚平台使用教程与科研动态。
玉米抗旱新机制:ZmEIL2通过多层调控增强耐旱性
原文:ZmEIL2 positively regulates drought tolerance in maize by modulating stomatal movement, hormonal homeostasis, and antioxidant defense.
期刊:Frontiers in plant science(影响因子 5.9) | PubMed | PMC 全文(含 PDF)
干旱是限制全球玉米产量的首要非生物逆境因子。随着气候变化加剧,极端干旱事件频发,解析玉米耐旱的分子机制、挖掘抗旱基因资源,已成为可持续农业与粮食安全领域的紧迫课题。近日,一项发表于 Frontiers in Plant Science(影响因子 5.9)的研究系统阐明了乙烯信号通路中的转录因子 ZmEIL2 如何通过“气孔运动—激素平衡—抗氧化防御”的多层次网络,正向调控玉米对干旱胁迫的耐受能力。
研究背景:从激素信号到抗旱转录因子
玉米(Zea mays L.)是全球最重要的粮食、饲料与工业原料作物之一。在自然条件下,植物应对水分亏缺依赖两类策略:生理层面通过关闭气孔减少蒸腾失水、积累脯氨酸(Pro)等渗透调节物质,并激活超氧化物歧化酶(SOD)、过氧化物酶(POD)、抗坏血酸过氧化物酶(APX)等酶促抗氧化系统以清除过量活性氧(ROS);分子层面则受脱落酸(ABA)与乙烯(ETH)等激素信号网络的精密编排。
在乙烯信号通路中,EIN3/EIL(ETHYLENE-INSENSITIVE3/EIN3-LIKE)家族转录因子位于乙烯感知下游的关键节点,负责将上游信号传递至下游乙烯响应因子。拟南芥中 EIN3 与 EIL1 冗余调控几乎所有乙烯反应;水稻中 OsEIL1、OsEIL2 参与 ROS 稳态与非生物胁迫响应。该团队前期已克隆玉米 ZmEIL2 基因,发现其可被干旱、PEG、ABA 和高盐显著诱导,但其在耐旱中的具体生理功能与转录调控路径此前并不清楚。
核心发现:ZmEIL2 是玉米抗旱的“正向开关”
研究以玉米自交系 B104 为野生型(WT),构建了 ZmEIL2 过表达株系(OE1、OE3)与敲除株系(KO3、KO4),通过渐进干旱—复水表型、生理生化指标、转录组测序(RNA-seq)与 qRT-PCR 验证,系统解析了 ZmEIL2 的功能。
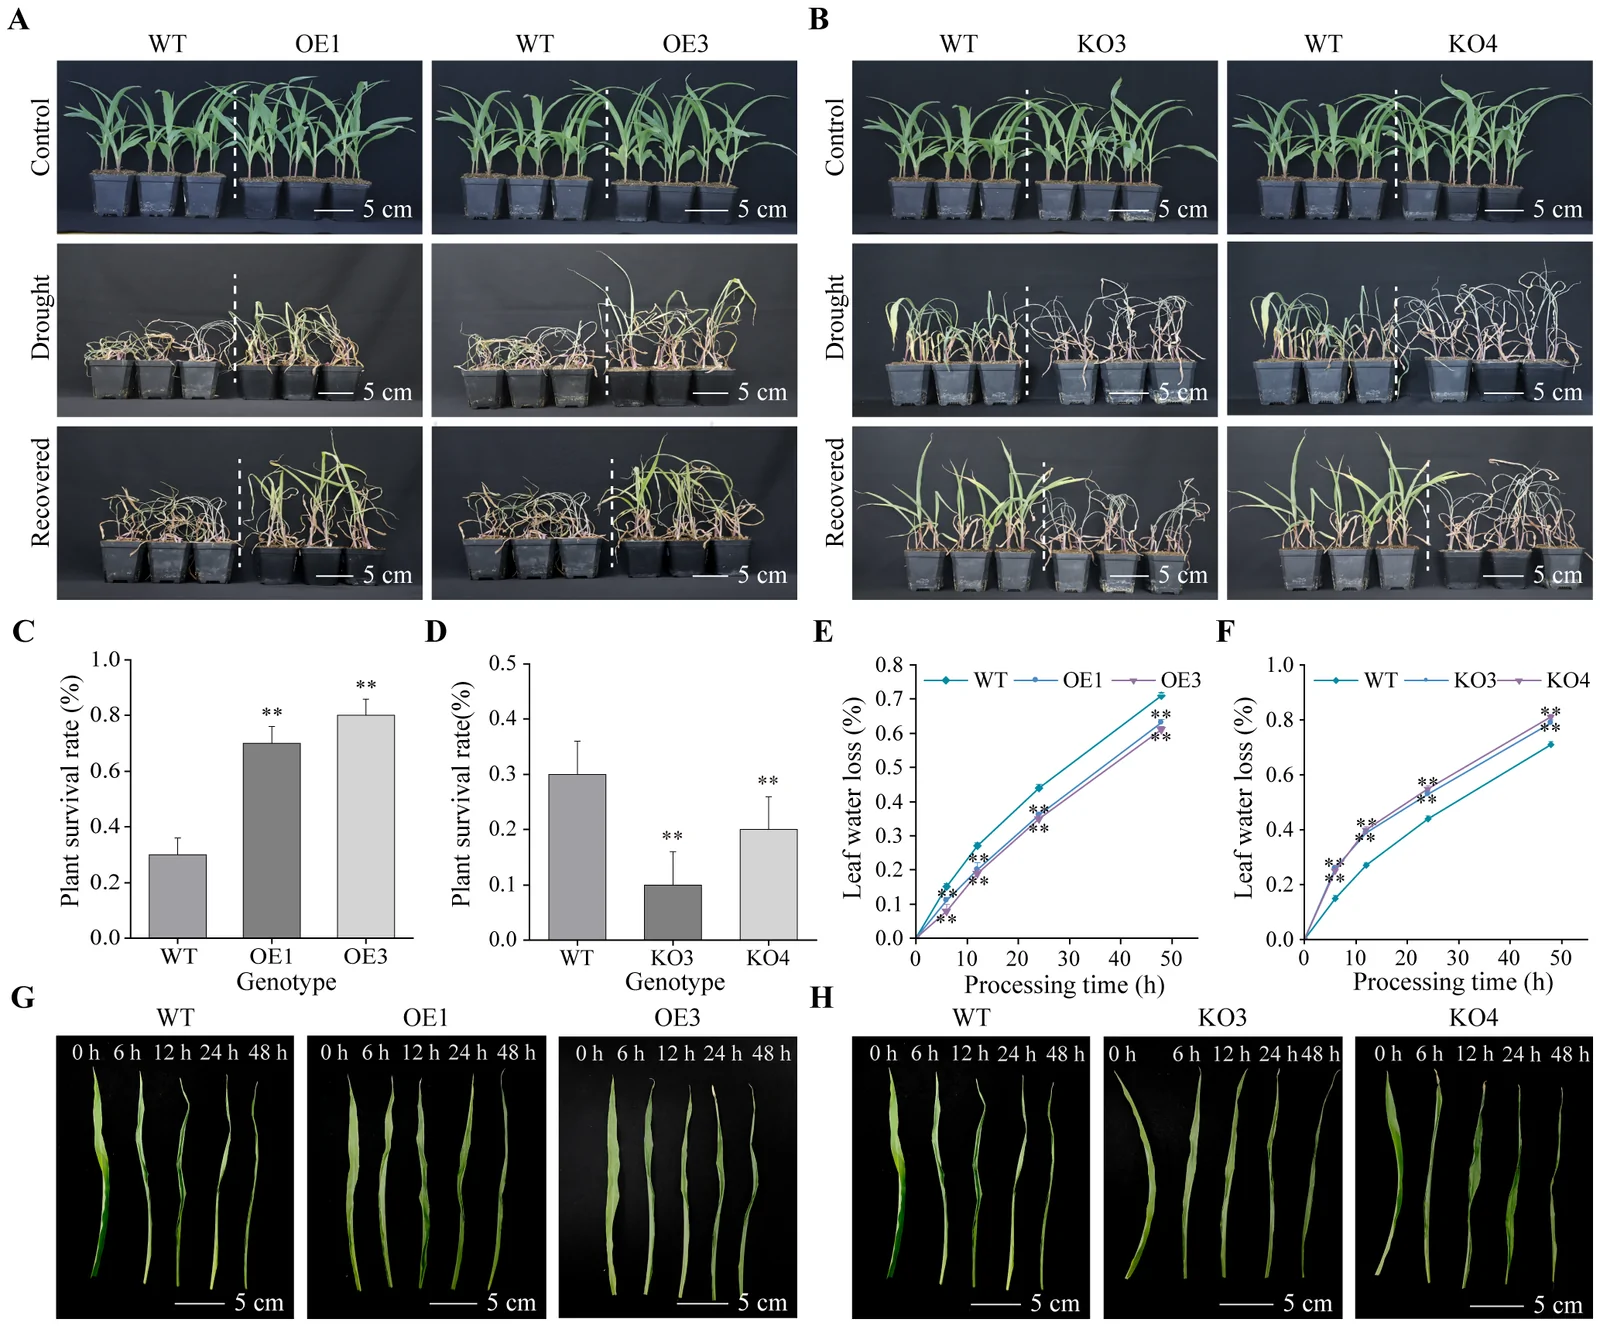
在正常浇水条件下,各转基因株系与 WT 生长状态无显著差异。但在干旱胁迫后,表型差异极为明显:过表达株系萎蔫更轻、复水后恢复更好,存活率较同期 WT 提高 1.1 倍(OE1)和 1.5 倍(OE3);而敲除株系叶片严重卷曲、叶尖黄化,复水后存活率显著低于 WT。离体叶片失水实验进一步显示,OE 株系在 6–48 小时脱水过程中失水率显著低于 WT(OE1 降幅 11%–27%,OE3 降幅 14%–44%),KO 株系失水率则大幅上升(KO3 增 14%–64%,KO4 增 11%–73%)。
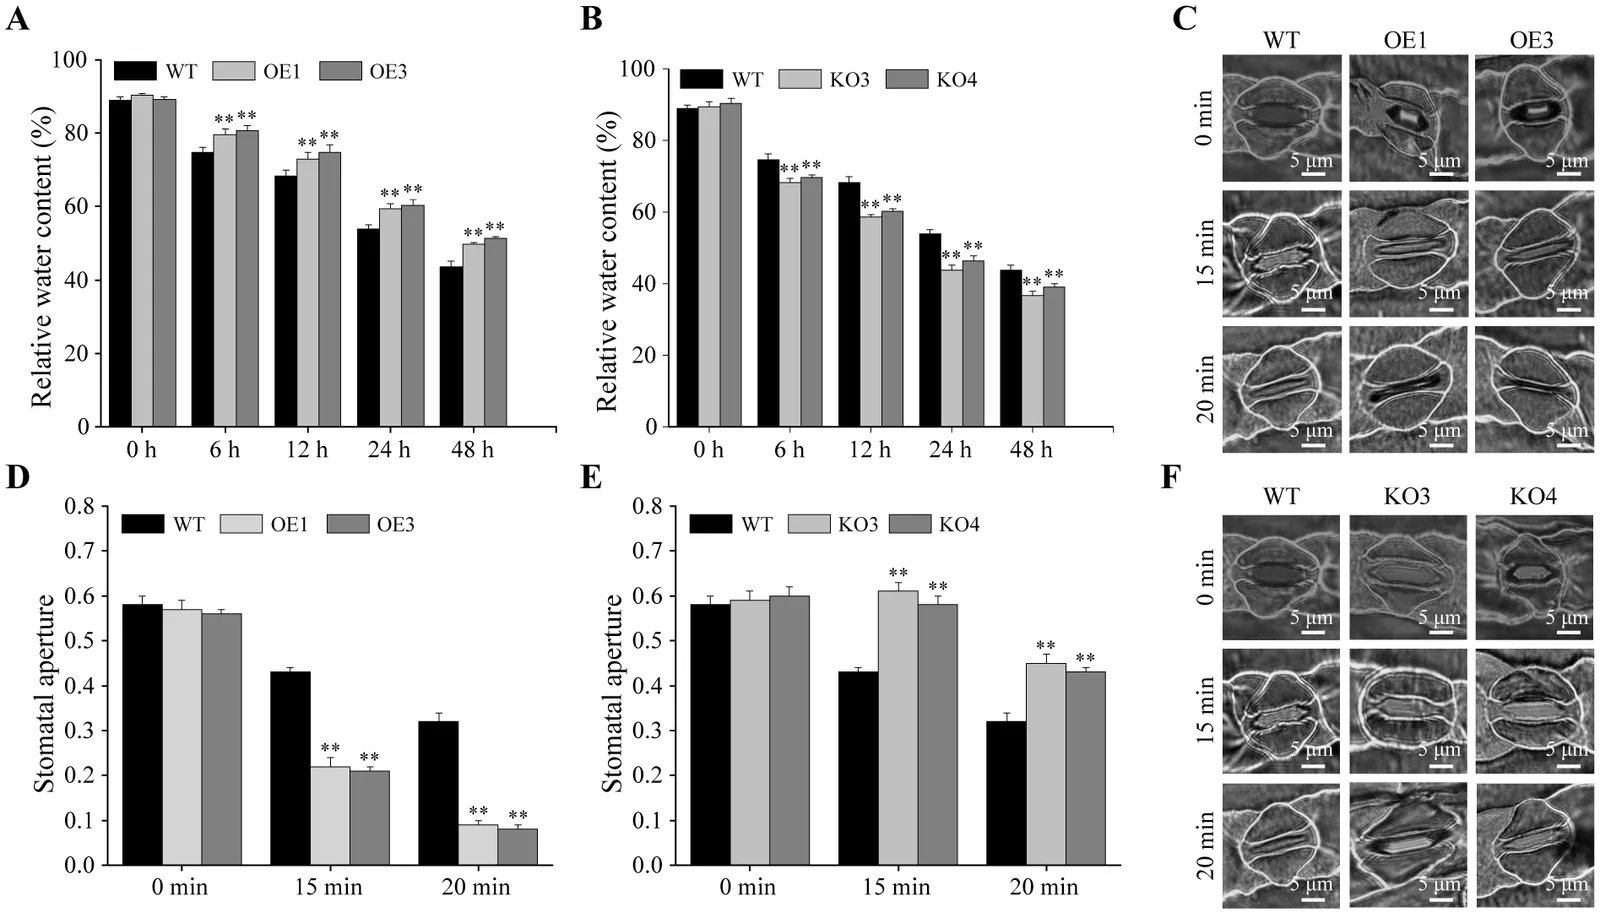
叶片相对含水量(RWC)测定表明,干旱 10 天和 13 天后,OE 株系维持更高 RWC(OE1 提高 6.70%–13.73%,OE3 提高 8.04%–17.54%),KO 株系则显著降低。机制上,ZmEIL2 通过加速气孔关闭来保水:脱水 15–20 分钟时,OE 株系气孔关闭显著快于 WT,而 KO 株系气孔开放程度反而比 WT 高 34%–42%。这说明 ZmEIL2 促进干旱下的快速气孔关闭,从而减少蒸腾失水。
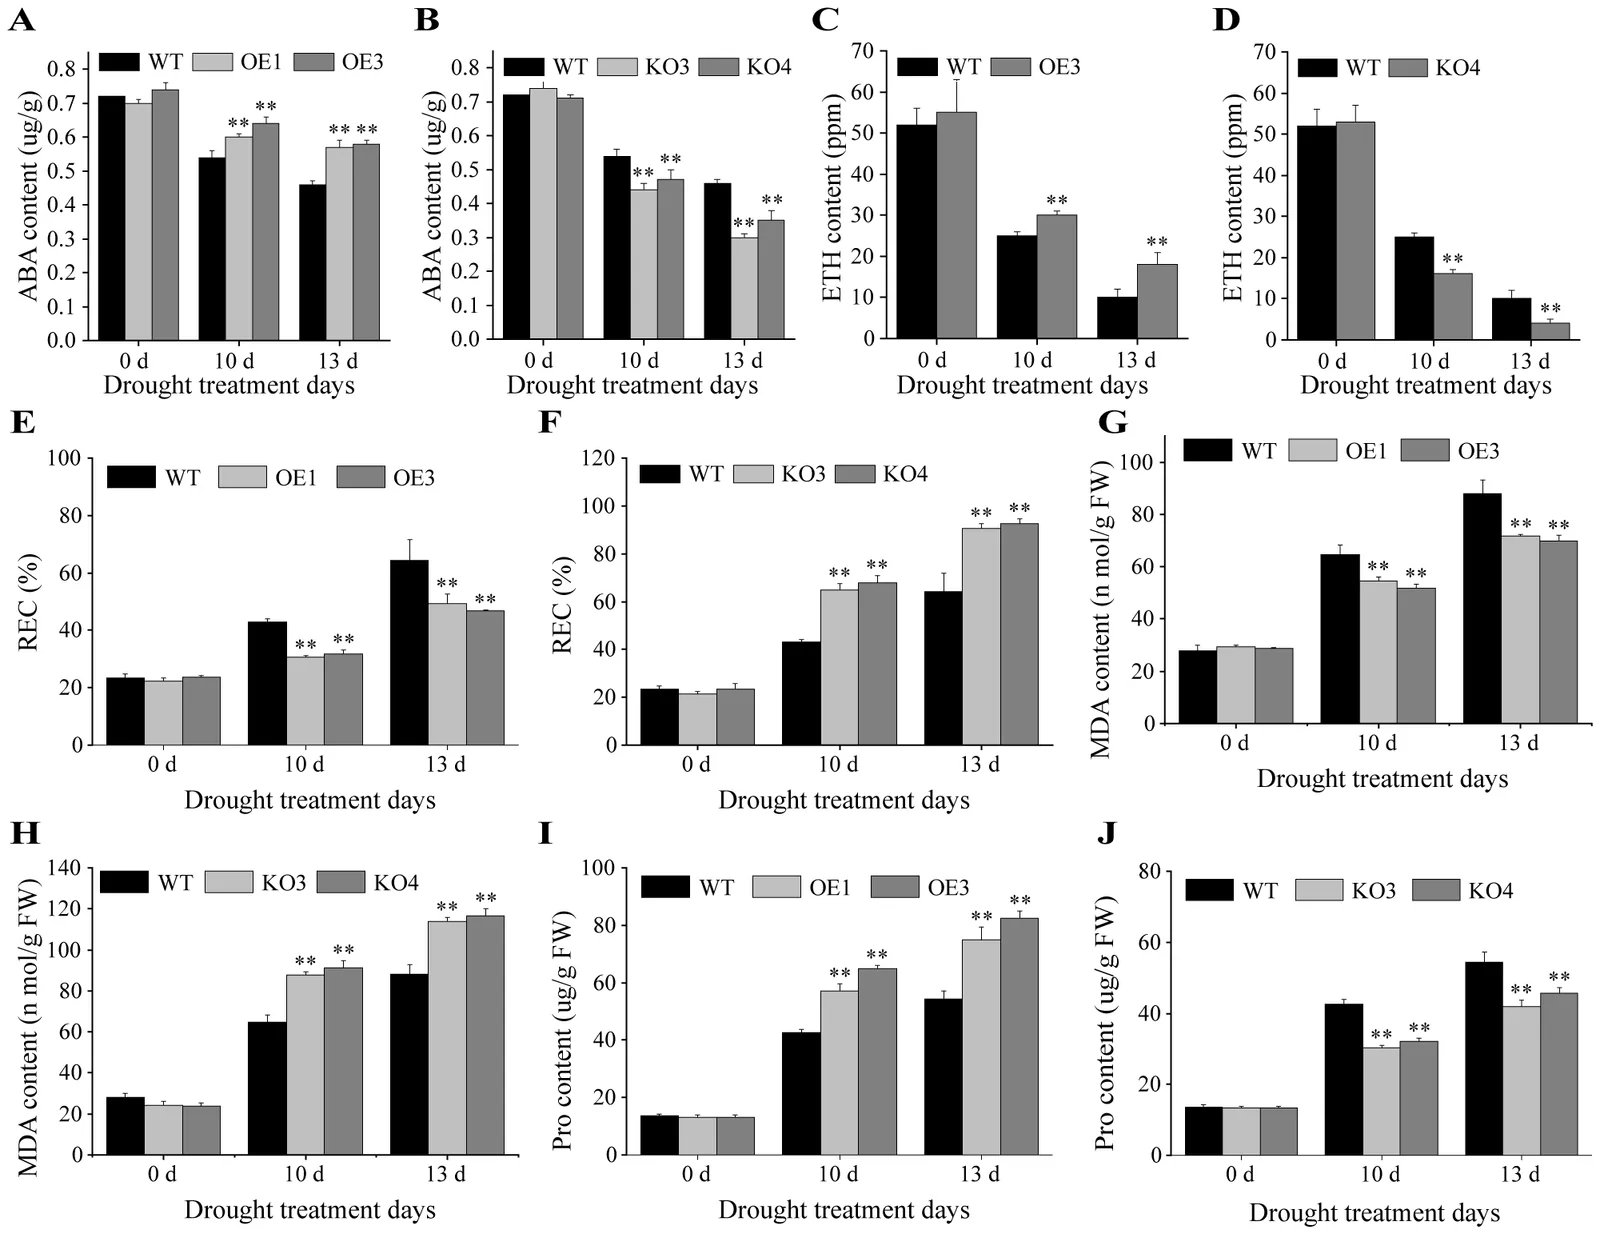
激素检测显示,干旱下 OE 株系内源 ABA 和 ETH 积累均高于 WT(OE1 ABA 增 11.72%–23.91%,OE3 增 18.52%–26.08%;OE3 ETH 增 18.44%–71.06%),而 KO 株系两种激素水平下降。ZmEIL2 通过提升 ABA 与 ETH 水平,联动促进气孔关闭与胁迫信号转导。
在膜损伤与渗透调节方面,干旱下 OE 株系的相对电导率(REC)和丙二醛(MDA,膜脂过氧化标志物)显著低于 WT,KO 株系则分别上升 41%–58% 和 29.5%–41.2%。同时,OE 株系脯氨酸积累增加 34%–52%,KO 株系脯氨酸合成能力受损。这表明 ZmEIL2 通过促进渗透保护物质积累,维护细胞膜完整性。
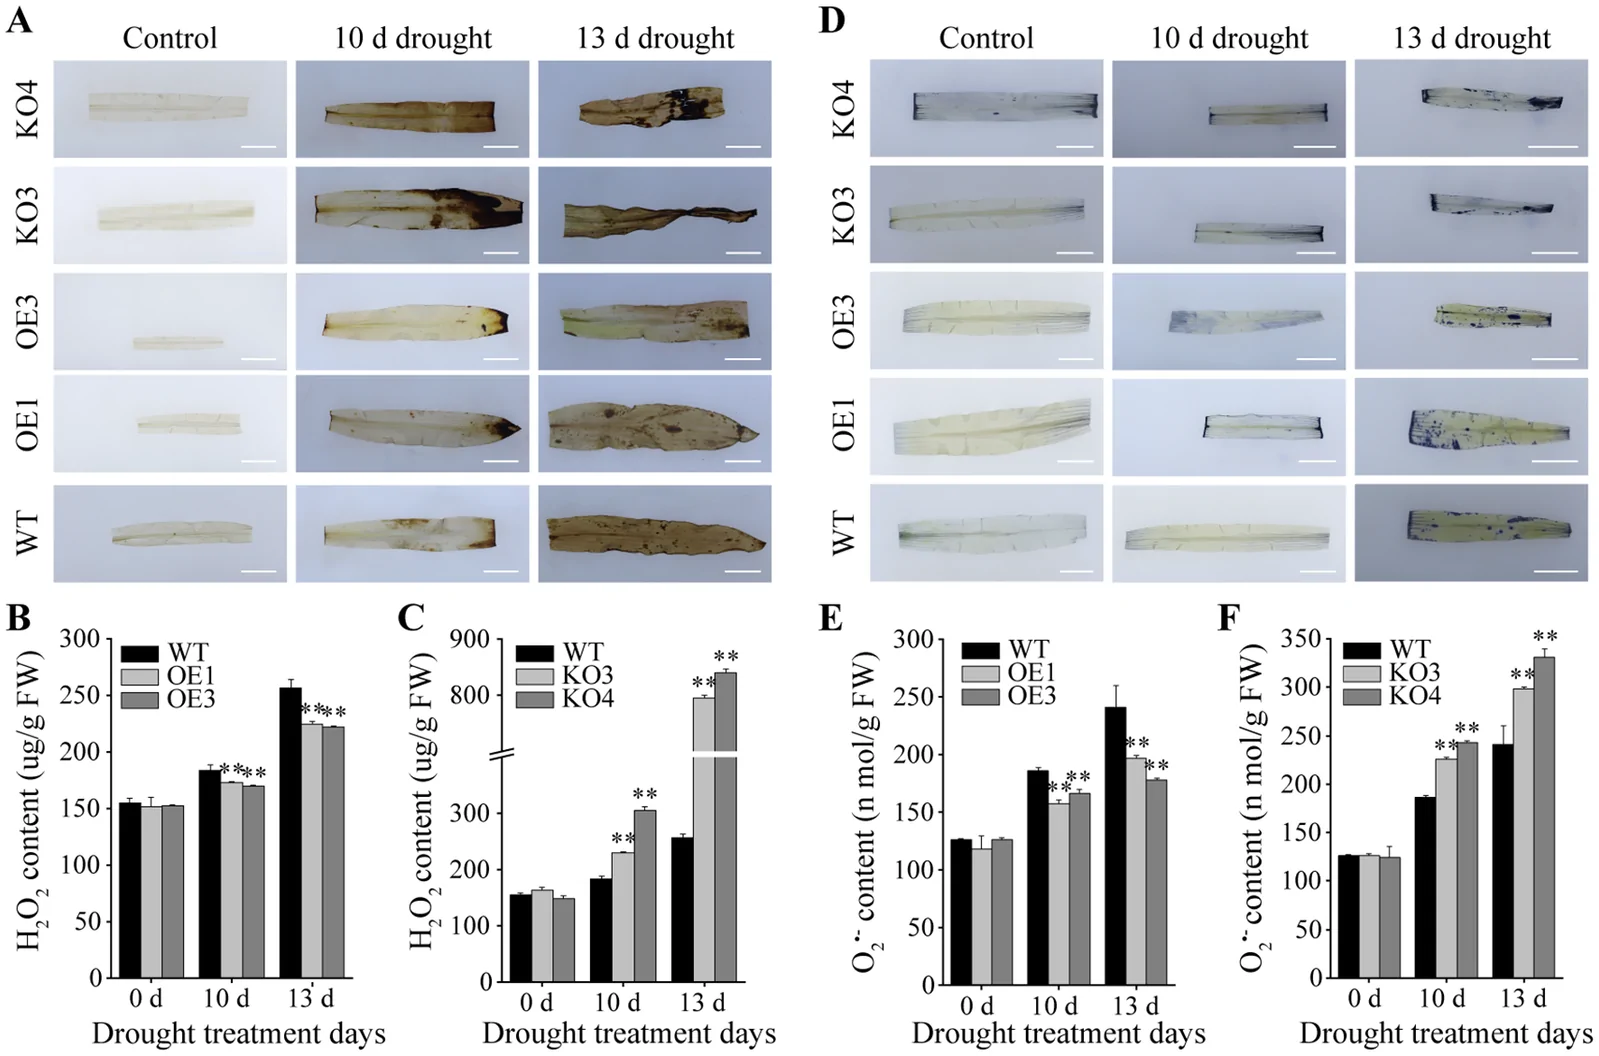
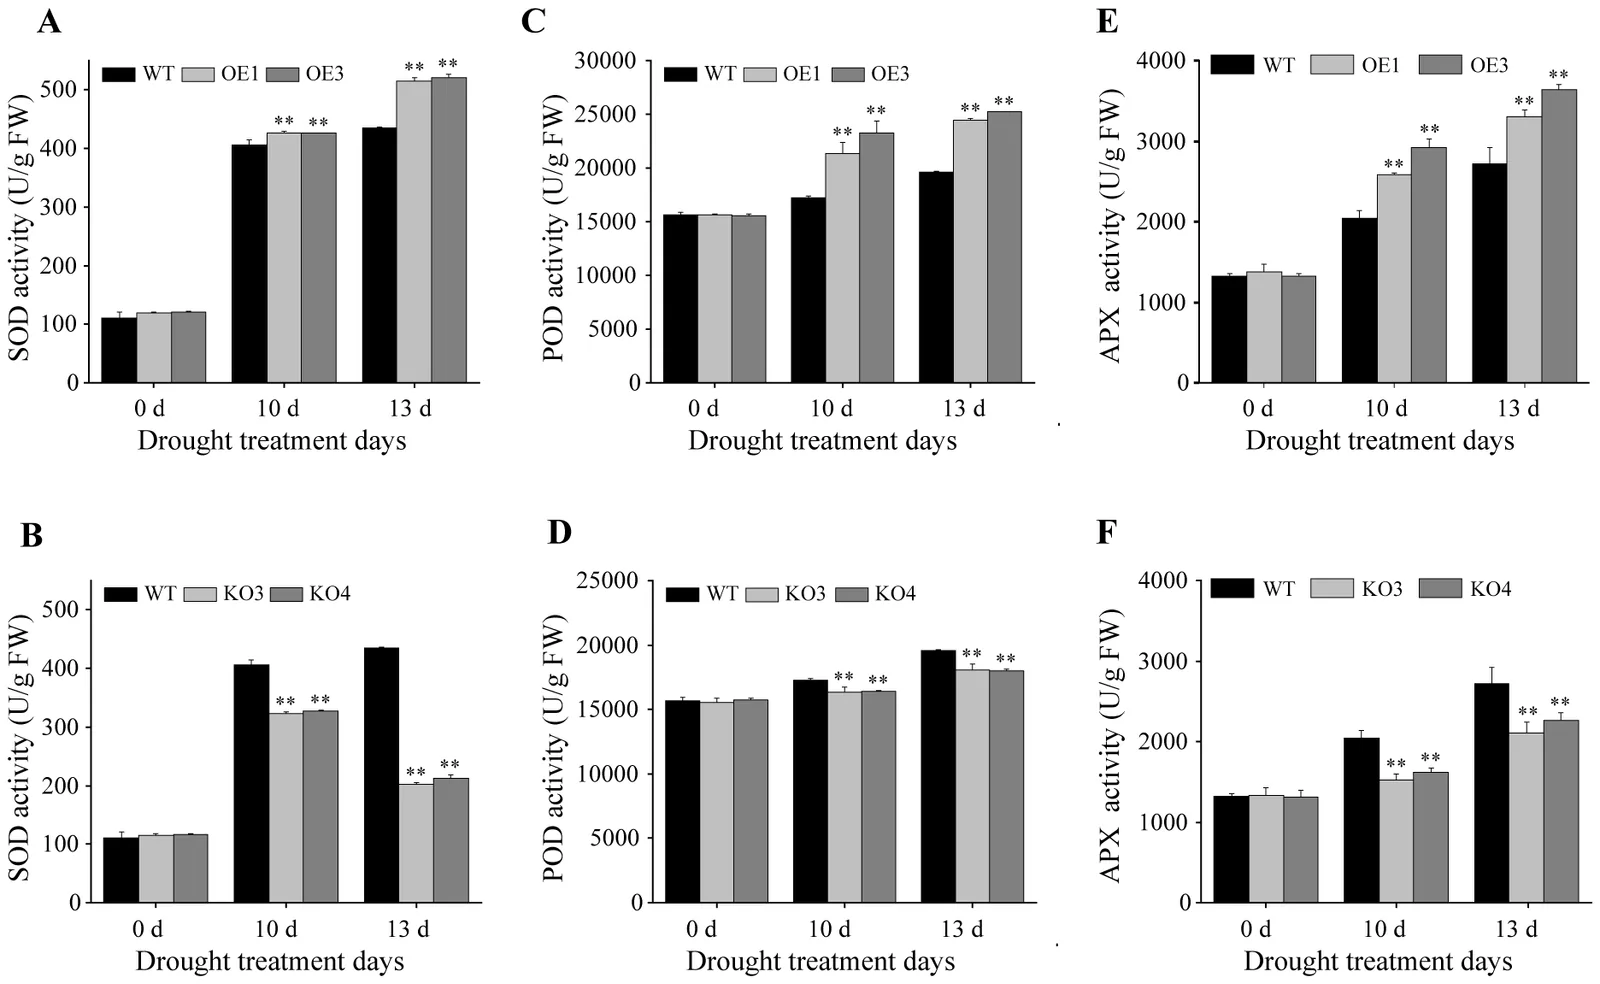
ROS 染色与定量结果更为直观:DAB(检测 H2O2)与 NBT(检测超氧阴离子 O2-)组织化学染色显示,干旱后 OE 叶片着色更浅、H2O2 与 O2- 积累更低;KO 叶片着色深、ROS 爆发更剧烈(KO3 O2- 增 21.29%–24.10%,KO4 增 30.24%–37.40%)。与之对应,干旱下 OE 株系 SOD、POD、APX 三种抗氧化酶活性均显著高于 WT,KO 株系则降低。ZmEIL2 由此强化了酶促 ROS 清除系统,减轻氧化损伤。
方法亮点:转录组锁定核心调控网络
研究对 WT、OE、KO 植株在干旱 0、10、13 天取样进行 RNA-seq,比较六组基因型—处理组合的差异表达基因(DEGs),并鉴定出 120 个核心干旱响应基因,涉及胁迫感知、氧化还原酶活性与代谢重编程。
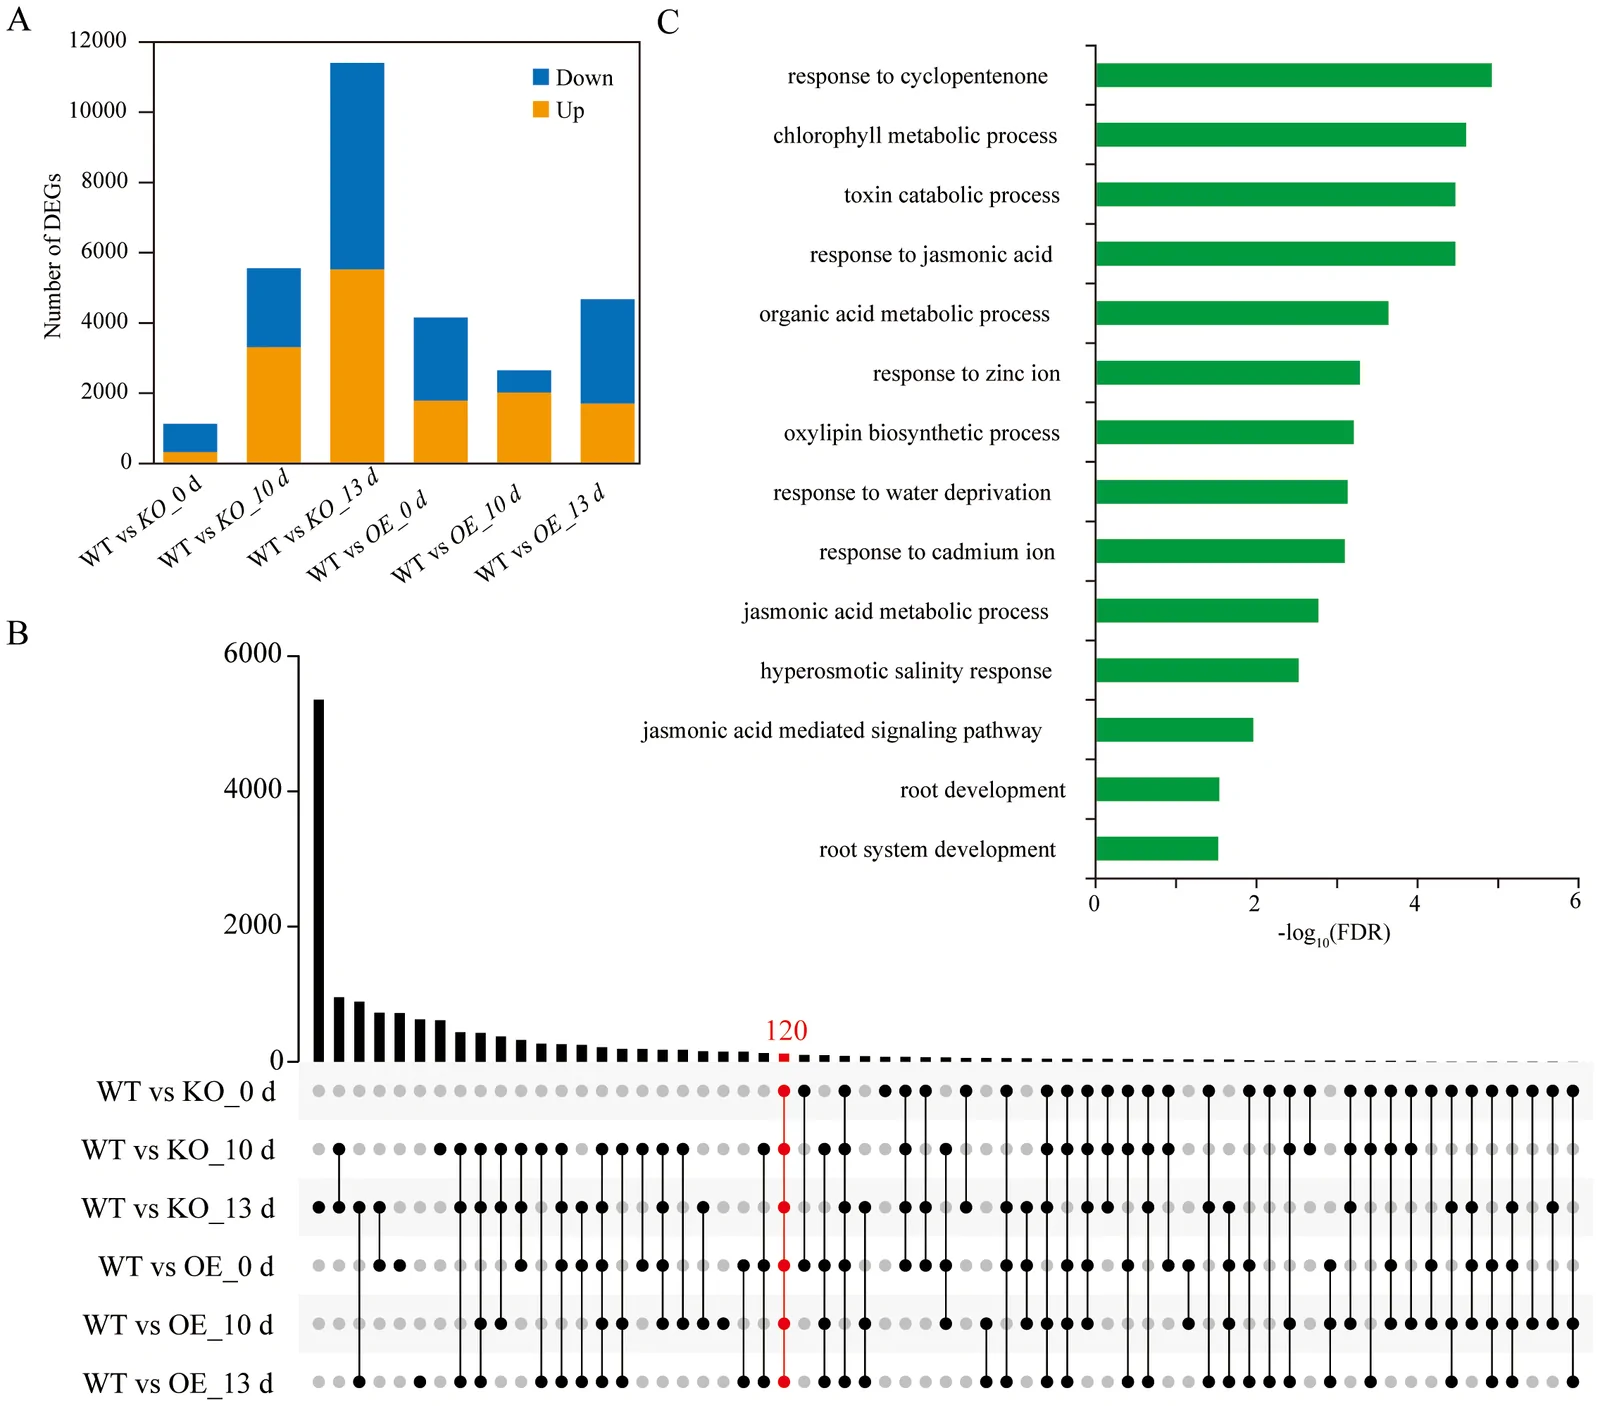
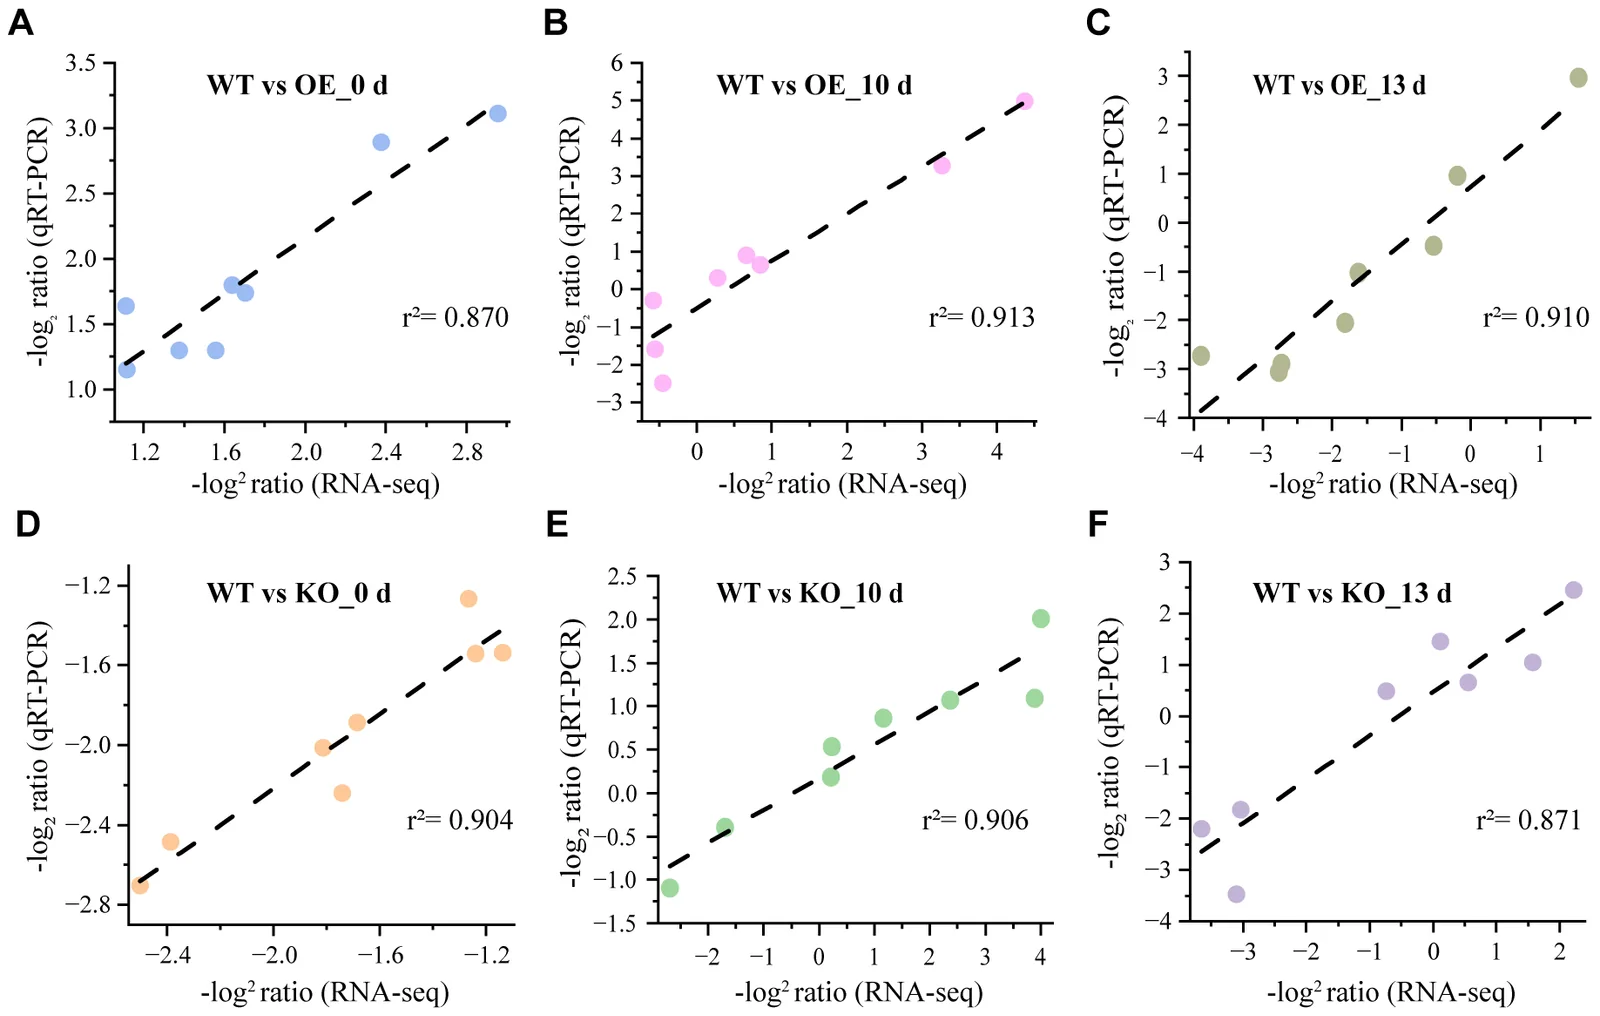
尤为关键的是,在正常条件下,有 11 个候选基因在 OE 与 KO 之间呈现严格相反的表达趋势,包括 ZmSOD16、ZmPAL7、ZmHSP101、ZmHSP70、ZmGA2ox3 和 ZmSMT1 等,分别关联抗氧化防御、蛋白保护、激素与碳水化合物代谢。qRT-PCR 验证了 8 个核心基因的表达倍数变化与 RNA-seq 结果高度一致,说明转录组数据可靠。
应用意义:为抗旱玉米育种提供候选基因
该研究证明,ZmEIL2 并非通过单一途径,而是以“气孔调控—激素平衡(ABA/ETH)—膜完整性—渗透调节(脯氨酸)—ROS 清除(SOD/POD/APX)”的多层机制,作为玉米耐旱性的正向调控因子发挥作用。其下游锁定的 ZmSOD16、ZmHSP 家族成员及代谢相关基因为分子设计育种提供了明确靶点。
对于作物抗逆遗传改良而言,ZmEIL2 本身或其调控网络中的关键节点,可作为培育“节水、耐旱、稳产”玉米新品种的候选基因资源。在气候变化背景下,这项工作从转录因子到生理表型、再到转录组网络的完整证据链,为禾本科作物抗旱机制研究提供了可借鉴的范式。
本文图片转载自 PMC 开放获取全文,仅供学习参考,请以原文为准。