原文:Infection mechanisms of Rhizoctonia cerealis in wheat.
期刊:iMeta(影响因子 44.4) |
PubMed | PMC 全文(含 PDF)
小麦是全球最重要的粮食作物之一,而由土传真菌引起的病害常年威胁其稳产。禾谷丝核菌(Rhizoctonia cerealis, Rc)是导致小麦纹枯病(sharp eyespot, SE)的主要病原菌。在中国,每年约有800万公顷小麦受到纹枯病影响,发病田块产量损失可达10%–40%;在欧洲,由于播种提前、高感品种种植以及气候条件更利于侵染,纹枯病发生率也在上升。由于Rc不产生无性孢子、有性阶段在自然界可能罕见,它以营养菌丝和菌核在病残体或土壤中越冬存活,防治难度较大。
目前生产上主要依赖杀菌剂控制纹枯病,但出于食品安全、非靶标生物影响及抗药性风险等考虑,杀菌剂使用正受到越来越多限制。利用寄主抗性本是更环保有效的替代方案,然而迄今尚未发现对纹枯病免疫或高抗的小麦种质,数量抗性位点(QTL)效应普遍较小,也难以通过正向遗传学直接用于育种。因此,从病原菌基因组与效应蛋白入手,解析其致病分子机制,成为突破小麦抗纹枯病育种瓶颈的关键路径。
核心发现:从全国采样到关键效应蛋白RcPL3的鉴定
研究团队在2014至2020年间,从中国30个主要小麦产区采集了1683株表现纹枯病症状的植株,通过单菌丝尖端分离获得335个分离物。基于rDNA内转录间隔区(ITS)测序,其中267个被鉴定为禾谷丝核菌(Rc),其余包括假禾谷镰刀菌、链格孢菌等多种病原。荧光显微镜确认这些Rc分离物每个细胞具两个细胞核,符合双核丝核菌特征。系统发育分析显示,79.8%的Rc属于融合群AG-D亚组I(AG-DI),20.2%可能属于暂命名为AG-DIV的新类群。
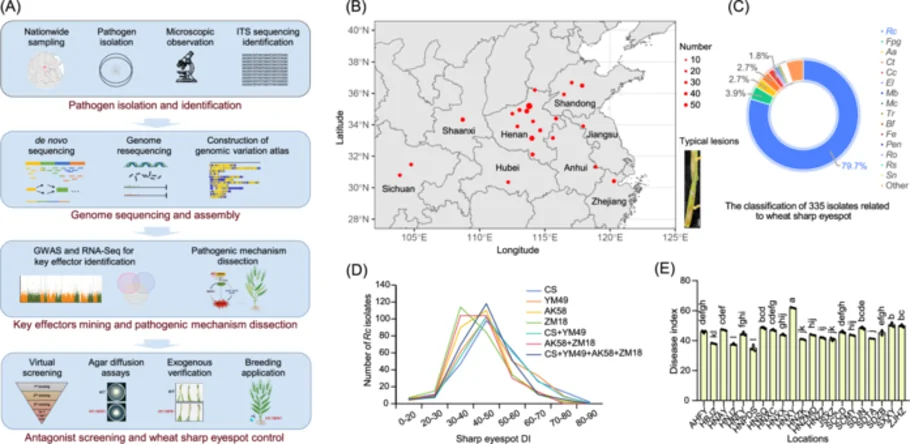 FIGURE 1 FIGURE 1: 中国主要麦区小麦纹枯病(SE)样本的采集地点及病原菌鉴定。(A) 本研究的实验设计与分析流程。(B) 22个禾谷丝核菌(Rc)采样点的分布及SE症状。红点大小代表Rc分离株的数量。黄色箭头指示典型的SE病斑。比例尺,3 mm。本图基于中华人民共和国自然资源部标准地图服务(地图审图号:GS(2024)0650)。(C) 基于rDNA内转录间隔区(ITS)序列分析,从所有335个分离株中鉴定出的病原菌。Fpg,假禾谷镰刀菌(Fusarium pseudograminearum);Aa,链格孢(Alternaria alternata);Ct,极细枝孢(Cladosporium tenuissimum);Cc,螺卷毛壳(Chaetomium cochliodes);El,Epicoccum layuense;Mc,卷枝毛霉(Mucor circinelloides);Tr,粉红单端孢(Trichothecium roseum);Bf,蚕豆葡萄孢(Botrytis fabae);Fe,木贼镰刀菌(Fusarium equiseti);Mb,Microdochium bolleyi;Mn,Microdochium nivale;Pen,青霉属(Penicillium spp.);Ro,米根霉(Rhizopus oryzae);Rs,立枯丝核菌(Rhizoctonia solani);Sn,Silene noctiflora。(D) 267个Rc分离株在7种Rc致病表型中的平均病情指数频率分布。CS,中国春(Chinese Spring)。YM49,豫麦49。ZM18,周麦18。AK58,矮抗58。DI,病情指数。(E) 来自21个采样点的Rc分离株平均病情指数的方差分析。数值为三次生物学重复的平均值±标准误(SE)。不同字母表示经单因素方差分析(ANOVA)及Tukey多重比较检验确定的显著差异(p < 0.05)。AHFY,安徽省阜阳市;HBJZ,湖北省荆州市;HNAY,河南省安阳市;HNJZ,河南省焦作市;HNLY,河南省洛阳市;HNPDS,河南省平顶山市;HNSQ,河南省商丘市;HNXC,河南省许昌市;HNXX,河南省新乡市;HNXY,河南省信阳市;HNZK,河南省周口市;HNZMD,河南省驻马店市;HNZZ,河南省郑州市;JSXZ,江苏省徐州市;SCCD,四川省成都市;SCMY,四川省绵阳市;SDJN,山东省济南市;SDTA,山东省泰安市;SDZB,山东省淄博市;SXXY,陕西省咸阳市;ZJHZ,浙江省杭州市。
利用四个小麦品种(Aikang 58、Zhoumai 18、Chinese Spring、Yumai 49)对267个Rc分离物进行致病力测定,平均病情指数(DI)介于11.75至75.44之间,表明不同分离物致病力差异显著;且来自不同地点的分离物在致病性上呈现明显地域差异。其中16个分离物(含R0301)DI≥60,为高致病力;13个(含R1-8、R10-1)DI≤30,为弱致病力。
为获得高质量基因组资源,团队选取5个AG-DI分离物(1个高毒R0301、2个中度和2个弱毒)进行de novo测序,结合Illumina短读长与PacBio Sequel长读长平台,并对其中3个(R0301、R5-3、R1-8)利用Hi-C技术组装至染色体水平,平均93.75%序列锚定在12条染色体上。五个基因组大小介于42.53–49.34 Mb,contig N50为1.78–2.89 Mb,BUSCO完整度达94.83%–97.57%。重复序列占24.29%–26.34%,以长末端重复反转座子为主;每个基因组预测含10,697–12,296个蛋白编码基因。
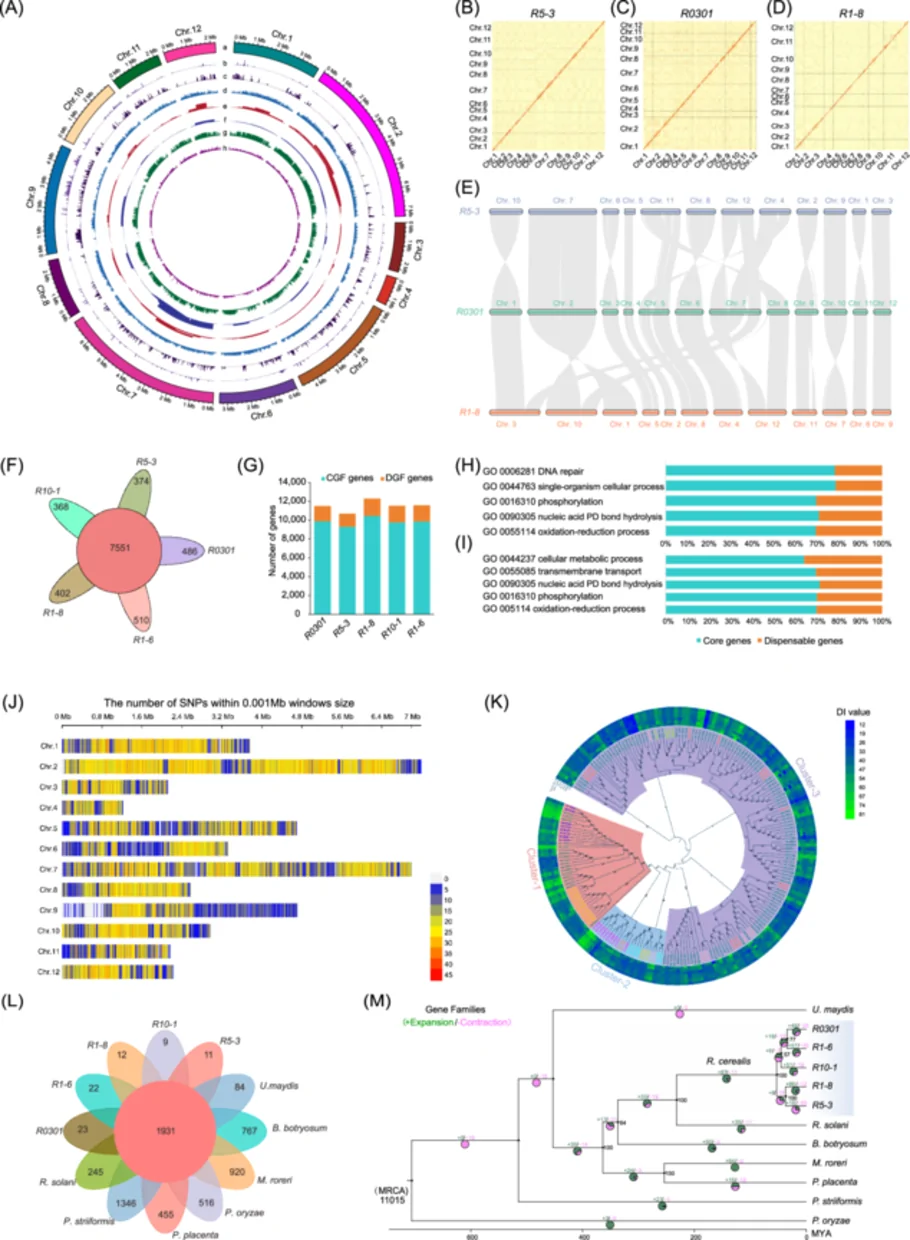 FIGURE 2 FIGURE 2: Rc基因组特征、变异图谱及担子菌物种间的进化分析。(A) Rc分离株R0301的基因组特征。a,染色体名称及相对大小。b和c,DNA转座子和逆转录转座子密度。d−f,基因分布、接种R0301前的表达及接种后5天(dpi)的表达。g和h,SNP和INDEL的分布。(B−D) Rc分离株R5‐3 (B)、R0301 (C)和R1‐8 (D)中Hi‐C组装染色体的互作热图。(E) R0301、R5‐3和R1‐8之间的基因组共线性。(F) 5个Rc分离株(R0301、R5‐3、R1‐8、R10‐1和R1‐6)的核心同源群(中心数字)和分离株特异性同源群(花瓣中的数字)的花瓣图展示。(G) 每个Rc分离株中CGF和DGF基因的数量。(H和I) CGF (H)和DGF (I)基因集中富集的前五个GO术语。(J) 显示Rc染色体上SNP数量的热图。(K) 基于基因组变异和毒力性状联合分析的系统发育树。(L) 12个真菌基因组的核心同源群(中心数字)和物种特异性同源群(花瓣中的数字)的花瓣图展示。(M) Rc与其他7个真菌基因组的系统发育树。分支上的饼图表示真菌物种中扩张(+)/收缩(−)基因家族的基因数量。CGF,核心基因家族;DGF,非必需基因家族;DNA,脱氧核糖核酸;GO,基因本体;Hi‑C,高通量染色体构象捕获;INDELs,插入‐缺失;SNPs,单核苷酸多态性。
泛基因组分析识别出11,411个直系同源群,包括7551个核心基因家族(CGF)和3860个可缺失基因家族(DGF)。进一步对207个Rc分离物进行重测序,获得719,791个高质量SNP,并构建系统发育树;结合致病力数据发现,来自四川、陕西和信阳的Cluster-1分离物毒力显著强于浙江、湖北为主的Cluster-2及山东、江苏、安徽、河南(除信阳)为主的Cluster-3,说明基因组变异与致病性密切相关。
在预测分泌蛋白与效应蛋白的基础上,团队锁定一个关键效应蛋白RcPL3。该蛋白属于果胶裂解酶家族,在侵染过程中上调表达,并被全基因组关联分析(GWAS)定位到与致病性显著相关的SNP位点。
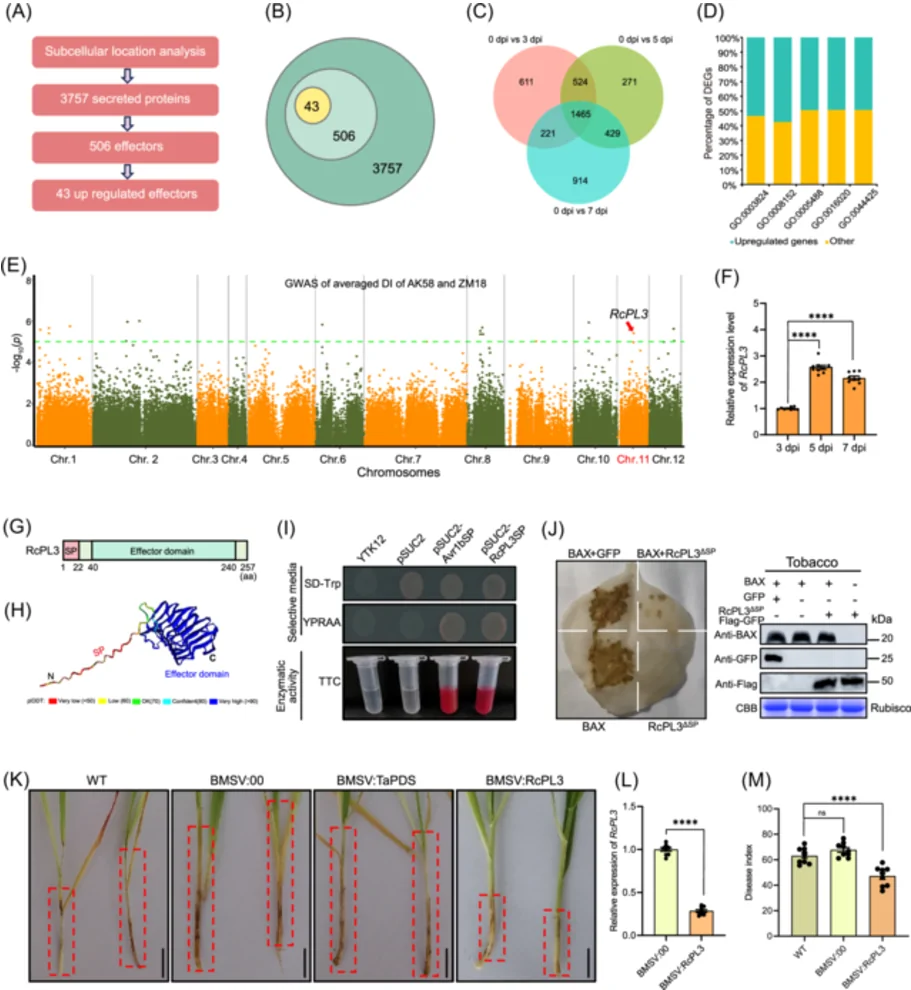 FIGURE 3 FIGURE 3: 效应蛋白RcPL3的鉴定与功能验证。(A) 亚细胞蛋白定位预测在5个Rc分离株中鉴定出3757个潜在分泌蛋白;其中506个被预测为效应蛋白;通过RNA‐Seq在侵染过程中检测到43个上调的效应基因。(B) 3757个潜在分泌蛋白基因、506个效应蛋白基因和43个上调效应基因的维恩图。(C) 来自两两比较(0 dpi vs. 3 dpi、0 dpi vs. 5 dpi和0 dpi vs. 7 dpi)的差异表达基因(DEGs)维恩图。(D) 上调和下调基因中富集的前五个GO术语。这些术语包括催化活性(GO:0003824)、代谢过程(GO:0008152)、结合(GO:0005488)、膜(GO:0016020)和膜部分(GO:0044425)。(E) 通过全基因组关联分析(GWAS)鉴定Rc致病性的曼哈顿图。红色箭头代表RcPL3的SNP位点。绿色虚线表示全基因组显著性阈值(p值 = 1.0e‐5)。(F) 通过定量实时聚合酶链式反应(qRT‐PCR)检测接种R0301后3、5或7 dpi小麦植株中RcPL3基因的表达水平。数值为三次生物学重复的平均值±SE。(G) RcPL3的蛋白结构。(H) 通过Alphafold2软件预测的RcPL3蛋白三维结构。(I) 检测酵母suc2突变体YTK12及其表达空载体pSUC2或带有RcPL3和Avr1b(阳性对照)信号肽载体的转化子在SD‐Trp‐葡萄糖琼脂或YPRAA平板上的生长情况以及TTC培养基中的转化酶活性。(J) RcPL3的瞬时表达抑制了由Bcl‐2相关X蛋白(BAX)触发的程序性细胞死亡(PCD)(左);BAX和RcPL3ΔSP蛋白水平的鉴定(右)。在指定位点,本氏烟叶片单独注射表达BAX/RcPL3ΔSP的农杆菌细胞,或在先注射GFP或RcPL3ΔSP 24小时后再注射表达BAX的细胞。代表性叶片在注射后4−5天拍照。(K−M) 病毒诱导的基因沉默(VIGS)验证RcPL3的功能。接种Rc分离株R0301的BSMV:00、BSMV:TaPDS和BSMV:RcPL3植株的表型(K)、相对表达水平(L)、病情指数(M)(每次重复12株,n = 9)。(K)中红色虚线框显示Rc的侵染位点。比例尺,(K)中为1 cm。(F和M)中的数据以平均值±SE及单个数据点表示(****p < 0.0001;单因素ANOVA及Dunnett多重比较检验)。(L)中的数据以平均值±SE及单个数据点表示(****p < 0.0001;非配对双侧t检验,至少三次生物学独立重复)。在(I−K)中,实验进行了至少三次生物学重复,结果相似。SP,信号肽;WT,野生型。
机制解析:RcPL3–TaHDA9–TaRHC1A–TaRBOH3级联调控
深入研究显示,RcPL3并非直接破坏植物细胞,而是通过“劫持”小麦自身的蛋白修饰系统来抑制免疫。RcPL3在小麦细胞质中与组蛋白去乙酰化酶TaHDA9发生物理互作,并提高TaHDA9蛋白积累,从而促进Rc侵染。
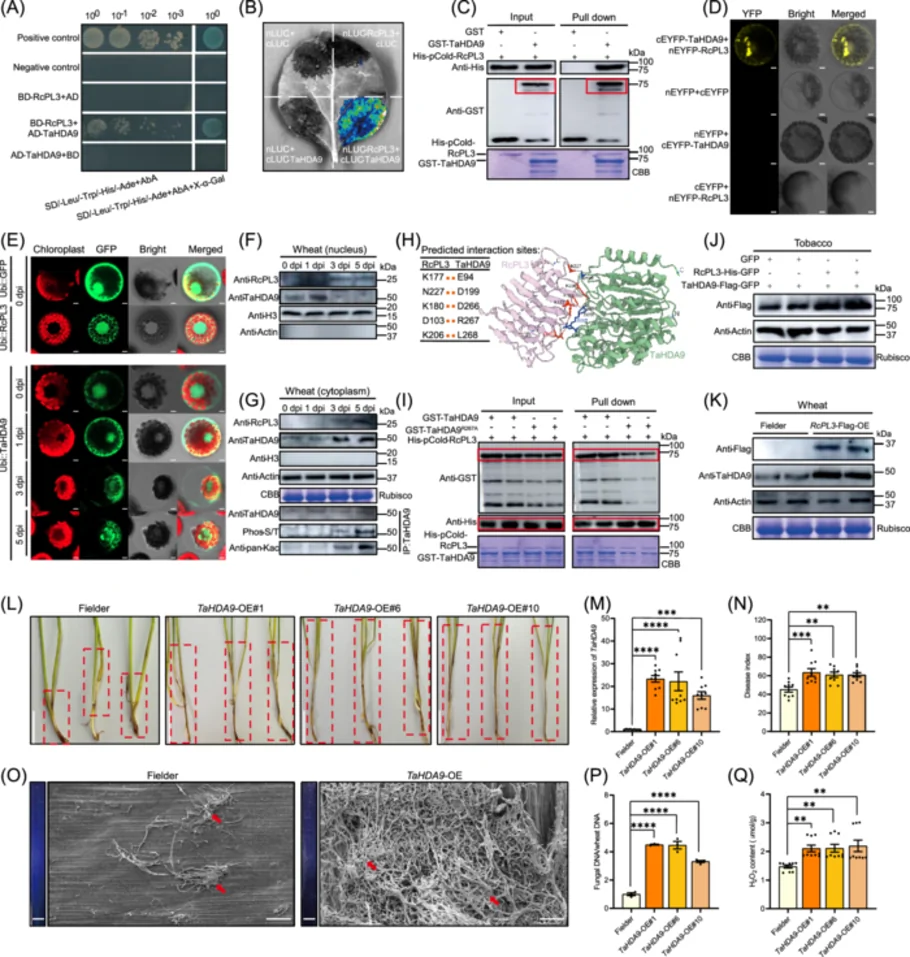 FIGURE 4 FIGURE 4: RcPL3通过物理互作招募TaHDA9以促进寄主对Rc的感病性。(A−D) 分别通过酵母双杂交(Y2H)(A)、本氏烟中的萤火虫荧光素酶互补成像(LCI)(B)、pull‐down (C)和双分子荧光互补(BiFC)(D)验证RcPL3与TaHDA9的互作。(C)中红框指示TaHDA9。(E) 0 dpi时小麦原生质体中Ubi::GFP‐RcPL3和Ubi::GFP‐TaHDA9融合蛋白的亚细胞定位,以及接种R0301后0、1、3和5 dpi时小麦原生质体中Ubi::GFP‐TaHDA9融合蛋白的亚细胞定位。GFP融合蛋白作为对照。绿色信号表示来自GFP融合蛋白的荧光,而红色信号显示小麦原生质体的叶绿体自发荧光。Bright,明场通道;Merged,各通道的合成叠加图。免疫印迹分别检测接种R0301后0、1、3和5 dpi时小麦细胞核(F)和细胞质(G)中RcPL3和TaHDA9的蛋白水平。(H) 通过Alphafold2分析,TaHDA9中五个位置(E94、D199、D266、R267和L268)的残基是与RcPL3互作的重要位点。(I) Pull‐down实验表明TaHDA9的R267A显著减弱了RcPL3与TaHDA9的互作。红框指示TaHDA9、TaHDA9R267A和RcPL3。(J和K) RcPL3增加TaHDA9蛋白的积累。免疫印迹检测本氏烟叶片细胞中瞬时表达35S::TaHDA9‐Flag‐GFP与(+)或不与(−)35S::RcPL3‐His‐GFP的情况(J);免疫印迹检测WT和RcPL3‐Flag‐OE小麦植株中TaHDA9的蛋白丰度(K)。TaHDA9‐OE株系显著降低SE抗性。WT和TaHDA9‐OE株系中病害反应(L)、TaHDA9相对表达水平(M)、SE病情指数(N)(每次重复12株,n = 9)、坏死细胞死亡和菌丝覆盖的台盼蓝染色(O)、Rc生物量(P)和H2O2含量(Q)的比较。比例尺,(D, E)中为5 μm,(L)中为1 cm,(O)中为100 μm。(O)中红色箭头显示Rc菌丝。(M和N)及(P和Q)中的数据以平均值±SE及单个数据点表示(**p < 0.01和****p < 0.0001;单因素ANOVA及Dunnett多重比较检验)。在(A−G)、(I−L)和(O)中,实验进行了至少三次生物学重复,结果相似。GFP,绿色荧光蛋白。
TaHDA9随后通过去乙酰化作用抑制E3泛素连接酶TaRHC1A的蛋白水平。也就是说,RcPL3间接通过TaHDA9降低了TaRHC1A的积累。而TaRHC1A本身正调控小麦对纹枯病的抗性:它促进合成活性氧(ROS)的TaRBOH3蛋白降解?原文机制为——TaRHC1A促进TaRBOH3降解以引起小麦SE抗性(即TaRHC1A通过调控ROS相关模块参与抗病)。当RcPL3–TaHDA9轴压制TaRHC1A后,这一抗性通路被削弱,病原菌得以成功侵染。
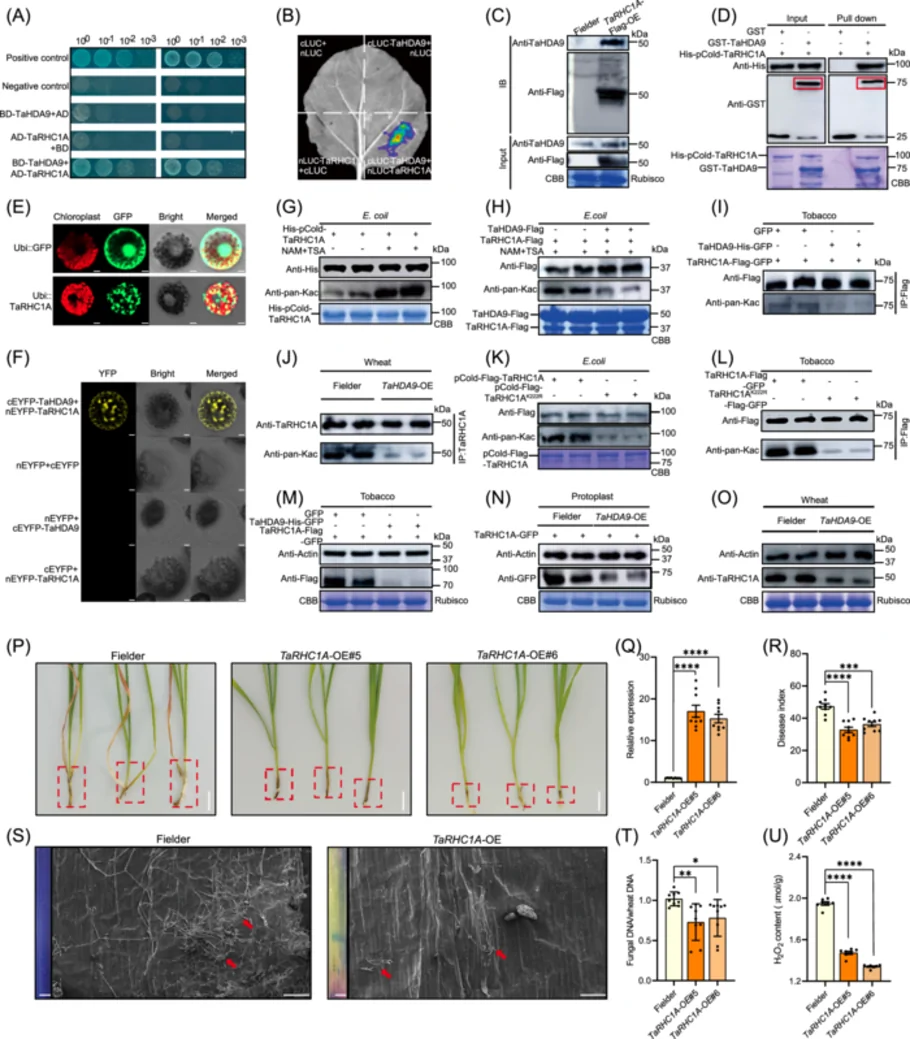 FIGURE 5 FIGURE 5: TaHDA9可能通过去乙酰化抑制TaRHC1A蛋白水平,且TaRHC1A正调控小麦对纹枯病的响应。(A−D) 通过Y2H (A)、本氏烟中的萤火虫LCI (B)、免疫共沉淀(C)和pull‐down (D)验证TaHDA9与TaRHC1A的互作。(D)中红框指示TaHDA9。IB,免疫印迹。(E) 小麦原生质体中Ubi::GFP‐TaRHC1A融合蛋白的亚细胞定位。GFP融合蛋白作为对照。(F) 通过BiFC验证TaHDA9与TaRHC1A的互作。(G) 从大肠杆菌中纯化的重组His‐pCold‐TaRHC1A蛋白被乙酰化,含有His‐pCold‐TaRHC1A构建体的大肠杆菌菌株在含有或不含有richostatin A (TSA)和β‐烟酰胺(NAM)的LB培养基中培养。TaRHC1A的乙酰化状态用泛Kac抗体(抗乙酰化赖氨酸抗体)测定。(H) TaHDA9在体外使TaRHC1A去乙酰化。通过体内免疫印迹测定大肠杆菌细胞中TaRHC1A在有(+)或无(−)TaHDA9情况下的赖氨酸乙酰化(Kac)状态。(I和J) TaHDA9在体内降低TaRHC1A的Kac水平。免疫印迹检测本氏烟细胞中TaRHC1A在有(+)或无(−)TaHDA9情况下的Kac水平(I)。用抗TaRHC1A特异性抗体免疫印迹检测TaHDA9‐OE株系和对照中TaRHC1A的Kac水平(J)。(K, L) K222R突变显著降低了TaRHC1A的Kac水平。通过免疫印迹测定大肠杆菌细胞中TaRHC1A和TaRHC1AK222R的Kac水平(K)。免疫印迹检测本氏烟叶片细胞中TaRHC1A或TaRHC1AK222R的Kac水平(L)。(M−O) TaHDA9降低TaRHC1A蛋白的积累。免疫印迹检测本氏烟叶片细胞中瞬时表达35S::TaRHC1A‐Flag‐GFP与(+)或不与(−)35S::TaHDA9‐His‐GFP的情况(M);免疫印迹检测野生型(Fielder)和TaHDA9‐OE小麦叶片原生质体中瞬时表达Ubi:TaRHC1A‐GFP的情况(N)。免疫印迹检测TaHDA9‐OE植株中内源TaRHC1A的蛋白丰度显著降低(O)。(P−U) TaRHC1A‐OE株系显著提高了小麦SE抗性。WT(Fielder)和TaRHC1A‐OE株系(TaRHC1A‐OE#5和TaRHC1A‐OE#6)中TaRHC1A基因的相对表达水平(Q)。WT和TaRHC1A‐OE株系中病害反应(P)、SE病情指数(R)(每次重复12株,n = 9)、坏死细胞死亡和菌丝覆盖的台盼蓝染色(S)、Rc生物量(T)和H2O2含量(U)的比较。比例尺,(E, F)中为5 μm,(P)中为1 cm,(S)中为100 μm。(S)中红色箭头显示Rc菌丝。(Q和R)及(T和U)中的数据以平均值±SE及单个数据点表示(*p < 0.05, **p < 0.01, ***p < 0.001和****p < 0.0001;单因素ANOVA及Dunnett多重比较检验)。在(A−P)和(S)中,实验进行了至少三次生物学重复,结果相似。
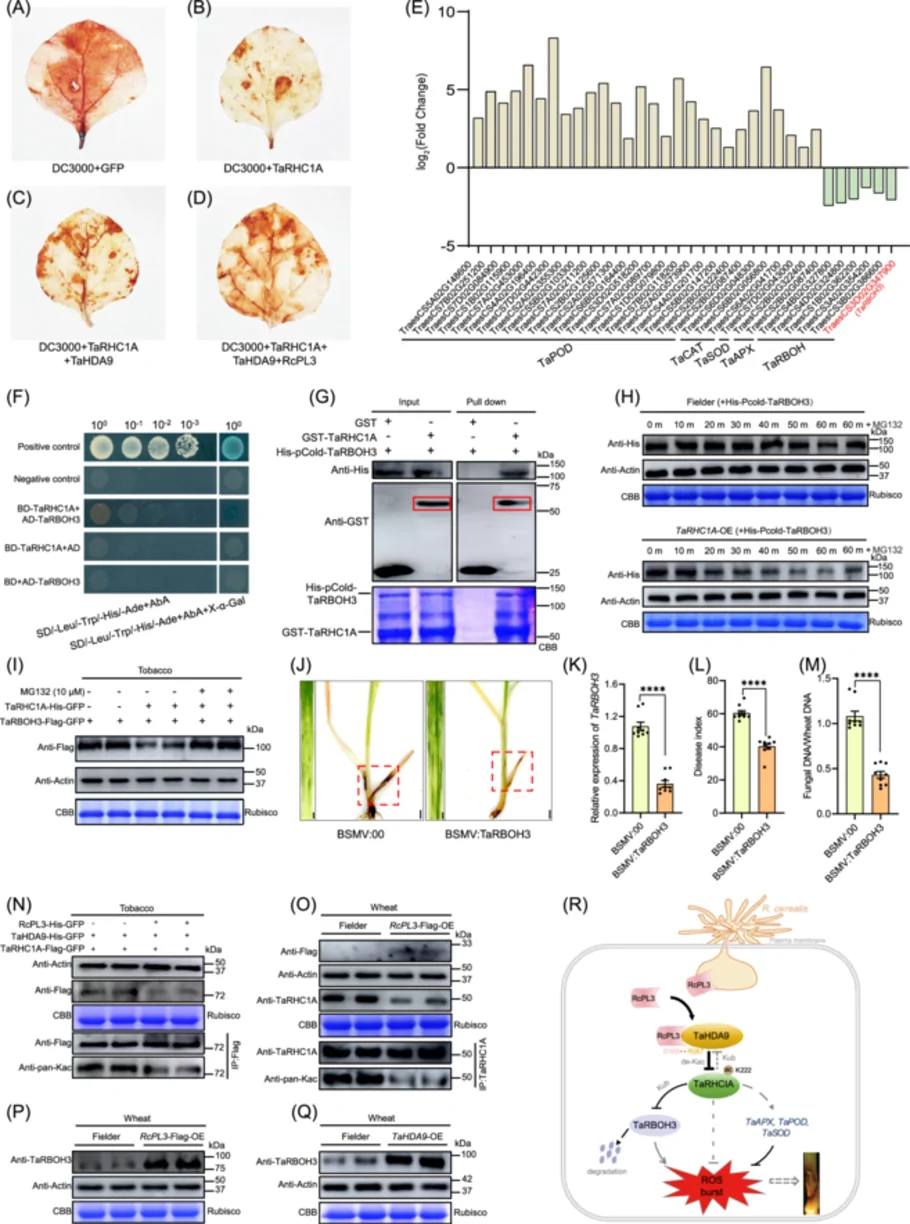 FIGURE 6 FIGURE 6: RcPL3作为关键效应子招募TaHDA9,后者通过去乙酰化抑制TaRHC1A,从而抑制TaRHC1A对TaRBOH3的降解。(A−D) 3,3’‐二氨基联苯胺盐酸盐(DAB)染色显示TaRHC1A能清除本氏烟中活性氧(ROS)的积累,但其清除ROS的能力被TaHDA9和RcPL3抑制。DC3000 + GFP,阳性对照;TaRHC1A,35S::TaRHC1A‐Flag‐GFP;TaHDA9,35S::TaHDA9‐His‐GFP;RcPL3,35S::RcPL3‐His‐GFP。(E) 转录组测序鉴定出6个下调和28个上调的参与ROS的差异表达基因(DEGs)。通过Y2H (F)和pull‐down (G)验证TaRHC1A与TaRBOH3的互作。(G)中红框指示TaRHC1A。(H) 在TaRHC1A‐OE植株中,TaRBOH3的蛋白水平可能通过26S蛋白酶体途径(使用无细胞系统)而降低。(I) 在本氏烟叶片细胞中,TaRHC1A可能通过26S蛋白酶体途径减少TaRBOH3蛋白量。VIGS验证TaRBOH3的功能。BSMV:00和BSMV:TaRBOH3植株的表型(J)、相对表达水平(K)、病情指数(L)(每次重复12株,n = 9)、Rc生物量(M)。(N) 在本氏烟中,RcPL3在TaHDA9存在下降低TaRHC1A的乙酰化水平和丰度。(O) 免疫印迹检测RcPL3‐OE植株中内源TaRHC1A的乙酰化水平和丰度降低。免疫印迹检测RcPL3‐OE植株(P)和TaHDA9‐OE植株(Q)中内源TaRBOH3的蛋白丰度显著增加。(R) RcPL3介导的Rc侵染小麦的 proposed 模型。比例尺,(J)中叶片为2 mm,整株为1 cm。(K−M)中的数据以平均值±SE及单个数据点表示(****p < 0.0001;非配对双侧t检验,至少三次生物学独立重复)。在(A−D)、(F−J)和(N−Q)中,实验进行了至少三次生物学重复,结果相似。de‐Kac,赖氨酸去乙酰化;Kub,赖氨酸泛素化。
由此,研究勾勒出一条完整的致病调控级联:RcPL3 → TaHDA9 ↑ → TaRHC1A ↓ → TaRBOH3/ROS模块改变 → 小麦感病。这一发现首次将真菌效应蛋白、植物去乙酰化酶、泛素连接酶与ROS介导的防御反应串联起来,阐明了禾谷丝核菌突破小麦免疫的分子逻辑。
方法亮点:多组学结合与拮抗剂虚拟筛选
本研究的创新性体现在多个层面。首先,它是迄今对Rc最大规模的采样与基因组解析:7年、30地、1683份病样、207个重测序基因组,以及5个染色体水平高质量图谱,为丝核菌属比较基因组学提供了宝贵资源。其次,团队建立了Rc效应蛋白库,从3757个潜在分泌蛋白中预测506个效应蛋白,并结合侵染转录组筛选出43个上调效应基因,极大缩小了候选致病因子范围。
在应用转化方面,研究者进一步针对RcPL3进行虚拟筛选,从28,520个已批准药物/化合物中鉴定出拮抗剂HY-19741,该化合物可阻止RcPL3介导的Rc侵染,为开发新型、低毒的纹枯病防控剂提供了先导分子。
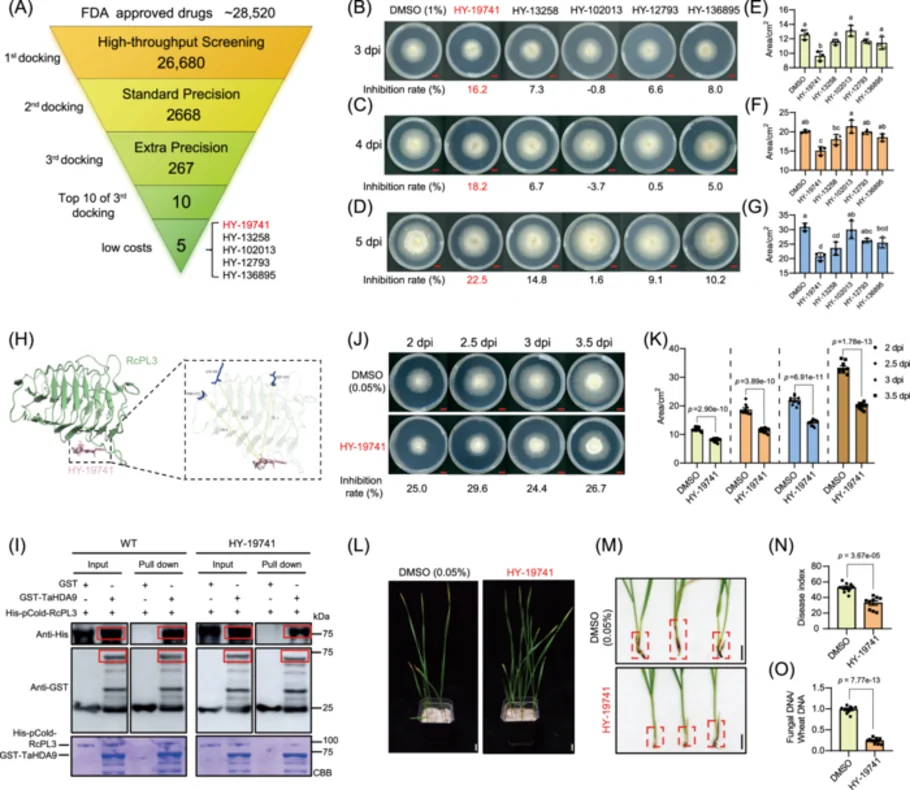 FIGURE 7 FIGURE 7: 拮抗剂HY‐19741阻止RcPL3介导的Rc侵染。(A) 通过虚拟筛选鉴定抑制RcPL3的候选化合物。使用Autodock vina将总共28,520个已批准药物(化合物)与RcPL3进行对接。首先,对所有可用化合物进行穷举度为8的高通量虚拟筛选(HTVS),并选择得分最高的前10%进入下一轮。其次,对化合物进行更精确的对接(标准精度筛选,SP)(穷举度:16),并选择得分最高的前10%进行最终评估(超精度筛选,XP),穷举度为128。(B−D) 分别在3 (B)、4 (C)和5 dpi (D)时,用50 μM HY‐19741、HY‐13258、HY‐102013、HY‐12793和HY‐136895处理Rc的图像及抑制率。(E−G) 分别在3 (E)、4 (F)和5 dpi (G)时,用上述五种候选化合物处理的菌丝生长面积的方差分析。(H) RcPL3与HY‐19741的三维互作模式。黄色虚线、粉色棒状和绿色卡通分别表示氢键相互作用、HY‐19741和RcPL3。(I) 竞争性pull‐down实验证实HY‐19741的存在明显减弱了RcPL3与TaHDA9之间的互作。红框指示RcPL3和TaHDA9。(J) 分别在2、2.5、3和3.5 dpi时,用50 μM HY‐19741处理Rc的图像及抑制率。(K) 在2−3.5 dpi时用HY‐19741处理的菌丝生长面积的方差分析。(L−O) HY‐19741在盆栽实验中阻止Rc侵染。用50 μM外源HY‐19741处理的植株表型(L和M)、纹枯病DI (N)和Rc生物量(O)。比例尺,(B−D, J和M)中为1 cm,(L)中为2 cm。(E−G)中的数据以平均值±SE及单个数据点表示;不同字母表示经单因素ANOVA及Tukey多重比较检验确定的显著差异(p < 0.05)。(K)和(N, O)中的数据以平均值±SE及单个数据点表示(非配对双侧t检验,至少三次生物学独立重复)。在(B−D)、(I, J)和(L, M)中,实验进行了至少三次生物学重复,结果相似。
应用意义:为小麦抗病育种与绿色防控提供新策略
由于小麦对纹枯病的抗性由微效QTL控制,传统育种难以直接利用。该研究通过解析病原效应蛋白作用网络,提出了“以效应蛋白为靶标”的反向育种思路:未来可借助基因编辑或分子标记,对TaHDA9、TaRHC1A、TaRBOH3等节点进行精准调控,创制具稳定抗性的小麦新种质。
同时,拮抗剂HY-19741的发现意味着除遗传改良外,还可发展基于小分子化合物的绿色农药,减少对环境与食品链的负面影响。总体而言,这项发表于iMeta(影响因子44.4)的工作,不仅填补了禾谷丝核菌基因组与致病机制的知识空白,也为全球小麦纹枯病的可持续治理提供了从基因到化合物的全链条解决方案。
本文图片转载自 PMC 开放获取全文,仅供学习参考,请以原文为准。