文章中心

了解、体验、感悟、分享——汇聚平台使用教程与科研动态。

云馆首页 资讯文章 新闻资讯 正文
新闻资讯

LINC00887抑制UPF1驱动糖酵解促进肾癌M2极化

Genelibs文献解读 2026-10-09 01:35 68 次阅读
原文:UPF1-dependent glycolysis driven by LINC00887 facilitates macrophage M2 polarization in clear cell renal cell carcinoma.
期刊:Frontiers in immunology(影响因子 7.0) |  PubMed | PMC 全文(含 PDF)

关键图表
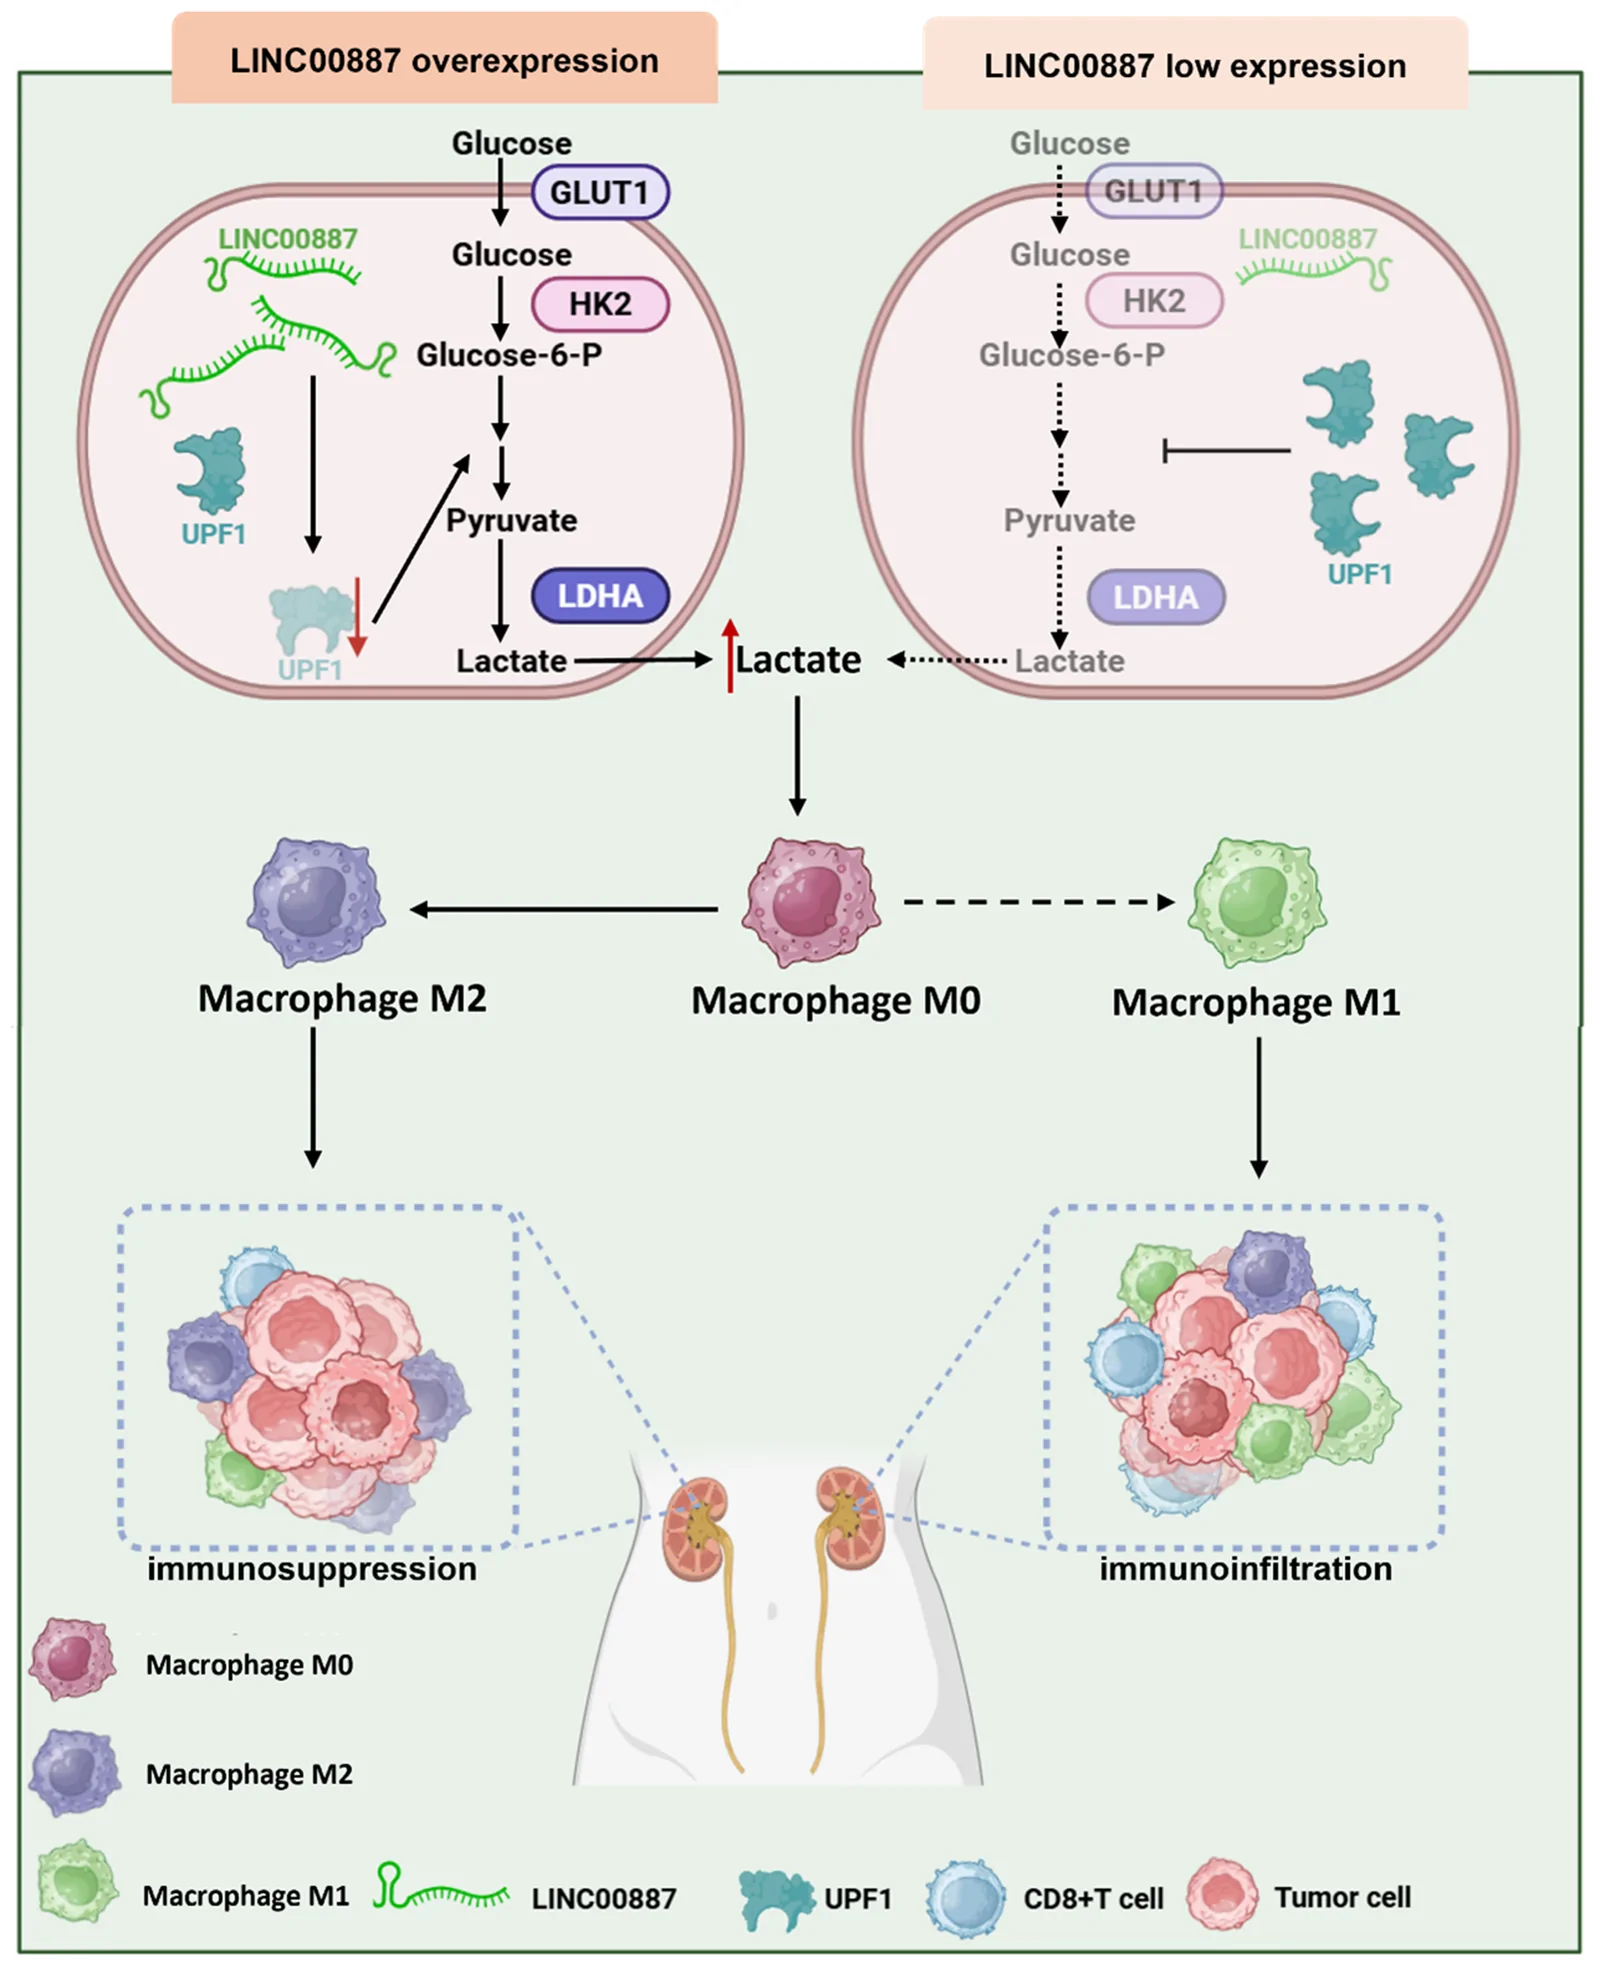
Figure 1
Figure 1 工作流程图。

肾细胞癌(renal cell carcinoma, RCC)是全球泌尿系统最常见的恶性肿瘤之一。根据最新全球癌症流行病学统计,RCC每年新发病例超过43.4万例、死亡约15.6万例。其中,透明细胞肾细胞癌(clear cell renal cell carcinoma, ccRCC)是最主要的组织学亚型,占所有RCC诊断的75%–80%。尽管手术或放疗可为早期ccRCC患者带来治疗缓解,但仍有近三分之一的患者会出现转移进展或肿瘤复发,预后明显受损。近年来,分子生物学与基因组学的发展推动了ccRCC治疗格局的变革,免疫治疗已成为一线策略;然而,部分患者会因原发或获得性耐药机制而逃避免疫监视,导致治疗抵抗与疾病恶化。

在ccRCC中,增强的有氧糖酵解尤为突出:糖酵解通量升高、氧化磷酸化受抑,并促进免疫抑制性肿瘤微环境(tumor microenvironment, TME)的形成。肿瘤相关巨噬细胞(tumor-associated macrophages, TAM)是TME中的关键免疫细胞,参与癌症生长、免疫调节、血管生成、耐药和转移等过程。根据分化与活性状态,TAM可分为M1型和M2型;其中M2型为促肿瘤表型。糖酵解产生的乳酸可通过多种机制影响巨噬细胞向M2型转化——在结直肠癌中乳酸驱动巨噬细胞向M2表型极化,在三阴性乳腺癌中乳酸通过GPR81激活PI3K-AKT-mTOR并促进巨噬细胞M2极化。因此,靶向TME中改变巨噬细胞极化的信号,可能成为优化治疗疗效、遏制癌症侵袭性的途径。

长链非编码RNA(lncRNA)虽不编码蛋白质,但在TME中并非“沉默”,可作为癌基因或抑癌基因调控肿瘤进展、代谢重编程和免疫调节。例如,lncRNA MILIP通过结合YBX1促进Snai1翻译激活而驱动ccRCC转移;LINC01094触发葡萄糖代谢从线粒体呼吸向糖酵解转变,从而促进乳腺癌进展。在此背景下,一项发表于《Frontiers in Immunology》(影响因子7.0)的研究揭示:LINC00887在ccRCC中显著上调,并通过负向调控UPF1表达,促进糖酵解代谢、诱导M2巨噬细胞极化,从而削弱CD8+ T细胞的抗肿瘤功能。

核心发现:LINC00887–UPF1轴如何重塑糖酵解与免疫微环境

研究团队首先基于TCGA-KIRC数据集(ccRCC 501例、正常69例)分析发现,LINC00887在ccRCC肿瘤组织中mRNA水平显著高于癌旁正常组织;同时,LINC00887与糖酵解相关基因、免疫细胞浸润及UPF1表达均存在相关性。通过Pearson相关分析,LINC00887与UPF1呈负相关。进一步的细胞实验显示,在Caki-1细胞中敲低LINC00887后,UPF1的mRNA水平上升,说明LINC00887可抑制UPF1表达。
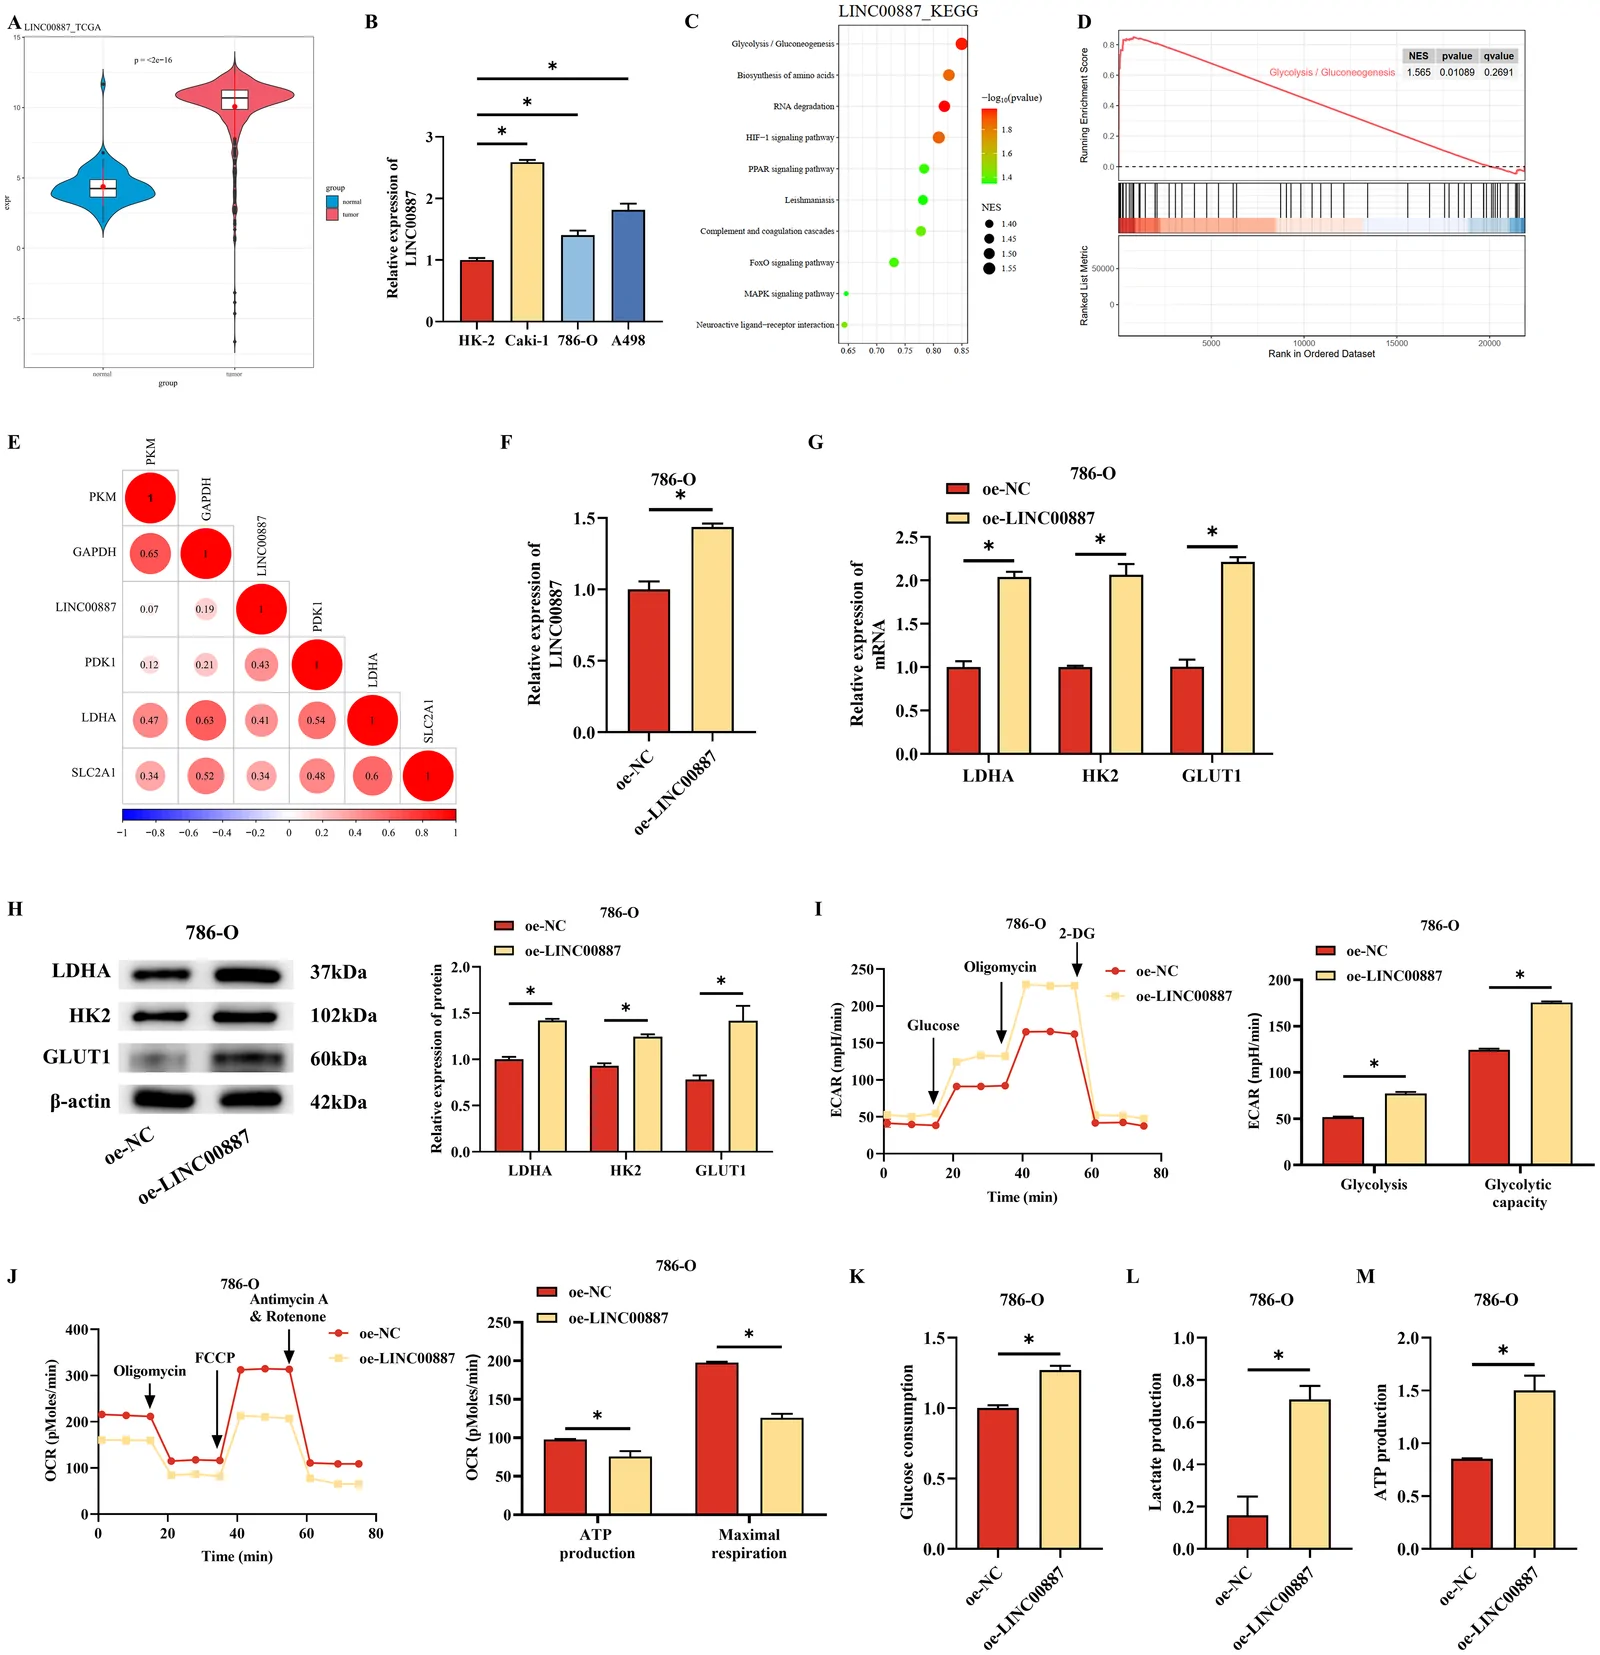
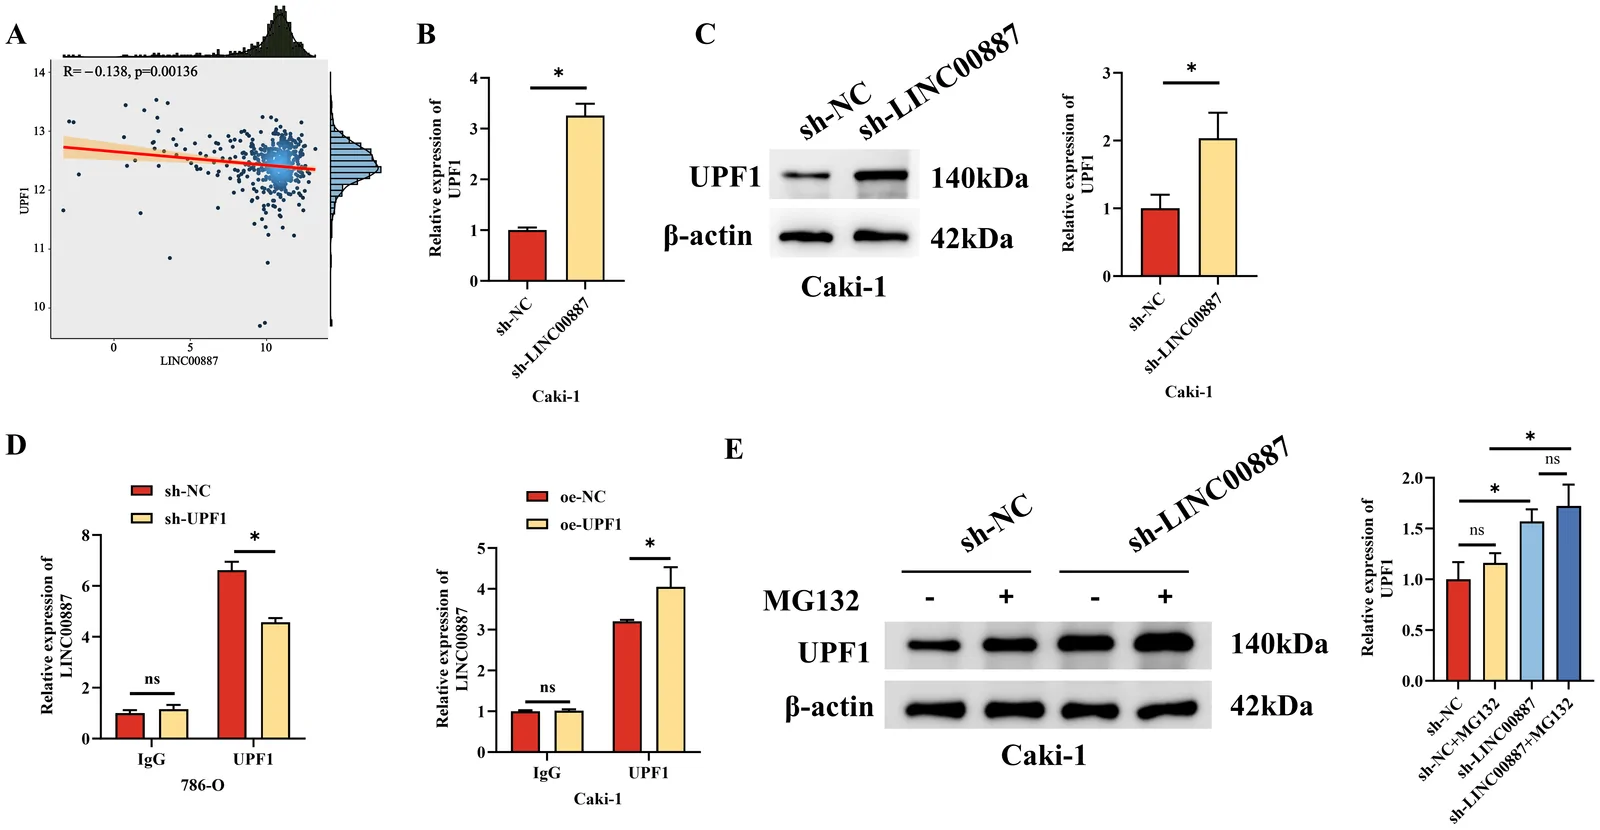
Figure 2
Figure 2 LINC00887 在透明细胞肾细胞癌中高表达及其对有氧糖酵解的影响,(A) 基于 TCGA-KIRC 数据集分析 ccRCC 及癌旁正常组织中 LINC00887 mRNA 水平。(B) qRT-PCR 检测 HK-2、786-O、Caki-1 和 A498 细胞系中 LINC00887 mRNA 水平。(C) KEGG 通路分析 ccRCC 中 LINC00887 富集的信号通路。(D) KEGG 分析显示 ccRCC 中 LINC00887 在糖酵解通路中的富集。(E) LINC00887 与糖酵解标志基因之间的 Pearson 相关性分析。786-O 细胞分别转染 oe-NC 或 oe-LINC00887。(F) qRT-PCR 验证转染效率。(G) qRT-PCR 检测各组细胞中糖酵解标志基因 LDH-A、HK2 和 GLUT1 的 mRNA 水平。(H) 免疫印迹分析各组细胞中糖酵解标志物 LDH-A、HK2 和 GLUT1 的蛋白水平。(I) 使用 Seahorse 代谢分析仪检测各组细胞的 ECAR,计算糖酵解值和糖酵解能力。(J) 使用 Seahorse 代谢分析仪检测各组细胞的 OCR,计算 ATP 生成量和最大呼吸量。(K–M) 使用试剂盒检测葡萄糖消耗量 (K)、乳酸生成量 (L) 和 ATP 产量 (M)。*表示 p < 0.05。ccRCC,透明细胞肾细胞癌;qRT-PCR,定量逆转录聚合酶链反应;KEGG,京都基因与基因组百科全书;LDH-A,乳酸脱氢酶 A;HK2,己糖激酶 2;GLUT1,葡萄糖转运蛋白 1;ECAR,细胞外酸化率;OCR,耗氧率;ATP,三磷酸腺苷。
Figure 3
Figure 3 LINC00887 与 UPF1 相互作用,(A) LINC00887 与 UPF1 的 Pearson 相关性分析。Caki-1 细胞转染 sh-NC 或 sh-LINC00887,(B) qRT-PCR 检测 UPF1 mRNA 水平。(C) 免疫印迹检测 UPF1 蛋白表达。(D) 786-O 细胞转染 sh-NC 或 sh-UPF1,Caki-1 细胞转染 oe-NC 或 oe-UPF1,进行 RIP 实验以验证 LINC00887 与 UPF1 的结合。ns,无显著差异;(E) 稳定表达 sh-NC 或 sh-LINC00887 的 Caki-1 细胞用蛋白酶体抑制剂 MG132 (10 μM) 处理 6 h,Western blot 检测 UPF1 蛋白水平。*,p < 0.05。UPF1,上游移码蛋白 1;qRT-PCR,定量逆转录聚合酶链反应。

机制上,RNA免疫沉淀(RIP)实验证实LINC00887可与UPF1相互作用。功能实验表明,高表达的LINC00887通过激活有氧糖酵解、促进乳酸堆积,诱导巨噬细胞向M2型极化。具体而言,LINC00887上调糖酵解关键分子——乳酸脱氢酶A(LDH-A)、己糖激酶2(HK2)和葡萄糖转运蛋白1(GLUT1)的表达,增强细胞外酸化率(ECAR)、葡萄糖消耗和乳酸生成;而UPF1则与有氧糖酵解呈负相关,能够抑制糖酵解活性和M2巨噬细胞极化,并增强CD8+ T细胞的肿瘤杀伤潜力。

在786-O细胞实验中,研究者设置了sh-NC+sh-NC、sh-LINC00887+sh-NC、sh-NC+sh-UPF1、sh-LINC00887+sh-UPF1等分组。结果显示,敲低LINC00887可逆转糖酵解活性,而同时敲低UPF1则恢复糖酵解表型,说明LINC00887是通过抑制UPF1来调控有氧糖酵解的。
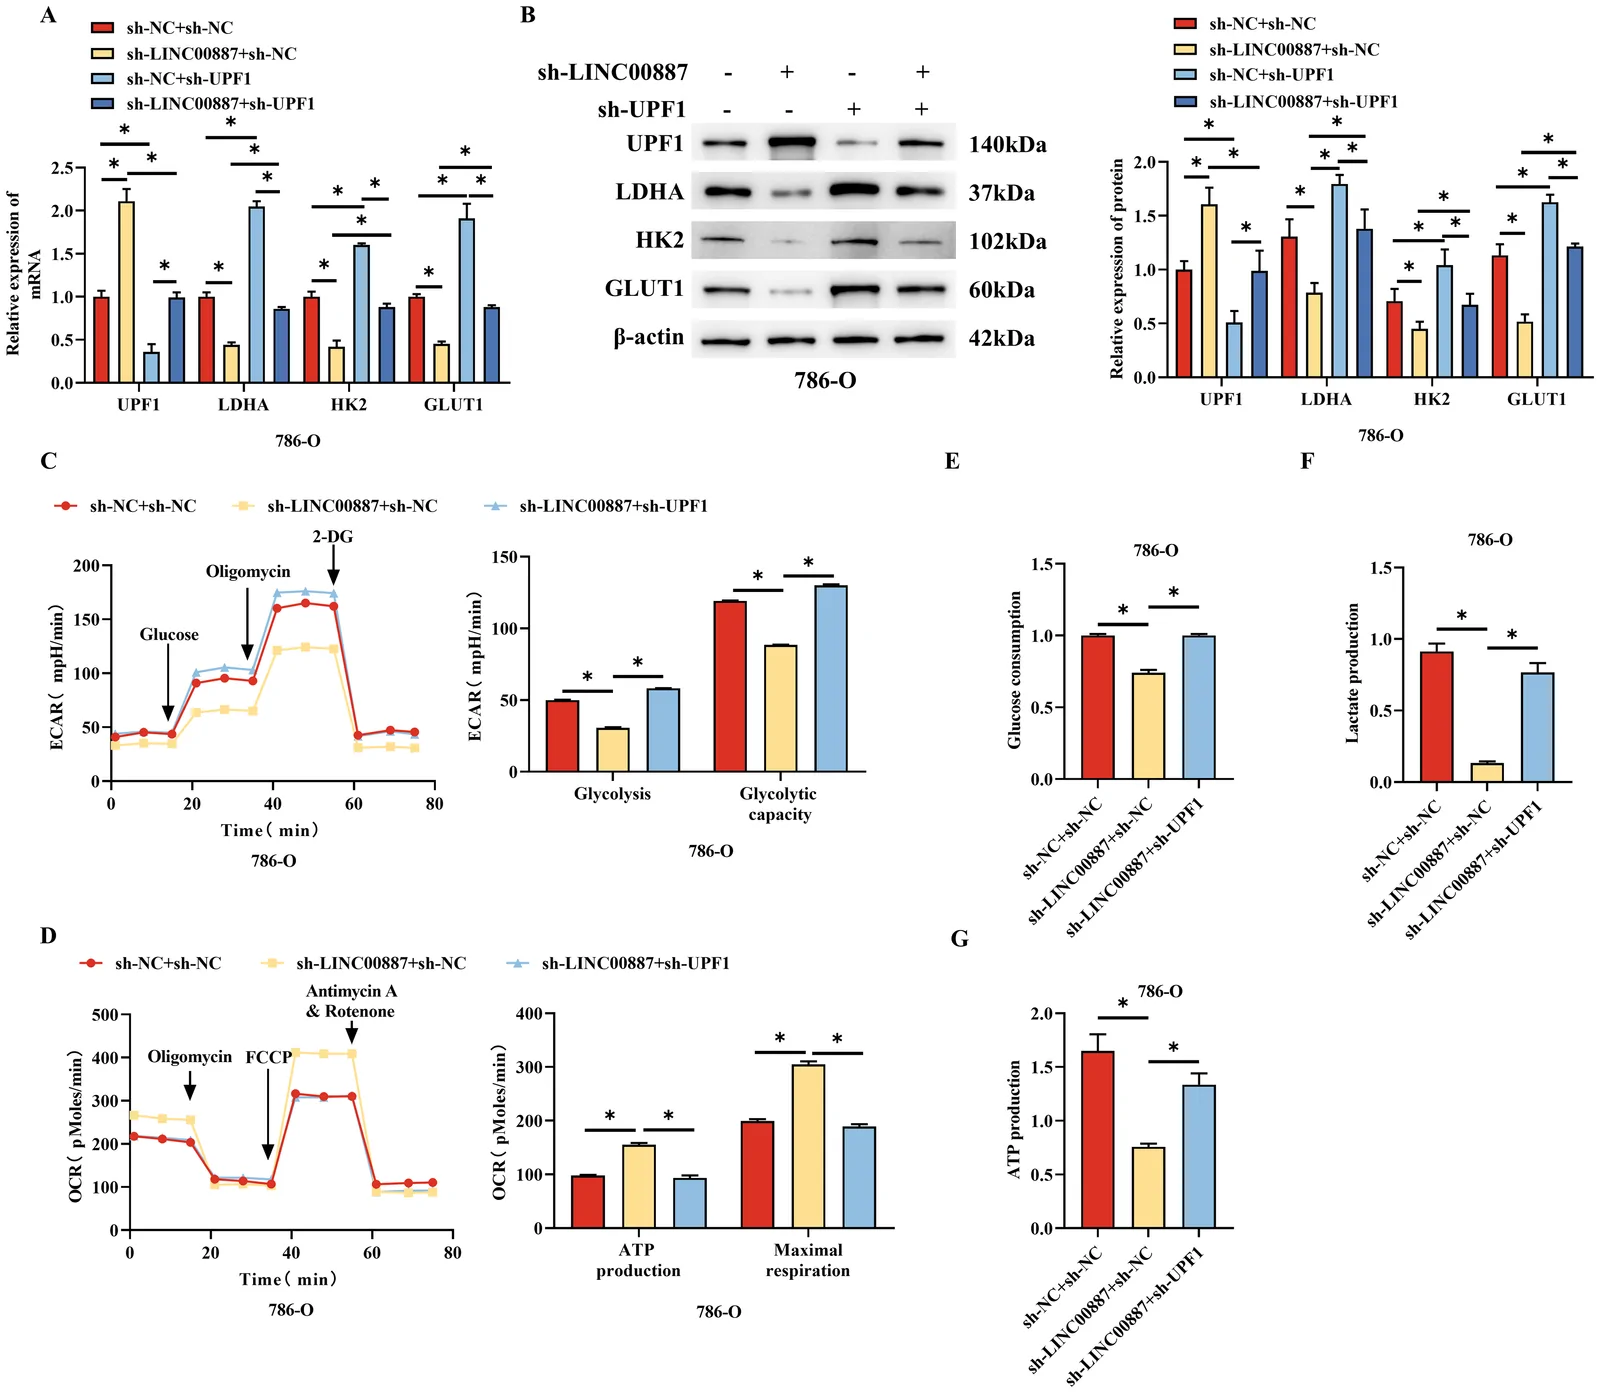
Figure 6
Figure 6 LINC00887 在 ccRCC 中通过与 UPF1 相互作用调控有氧糖酵解,786-O 细胞分别转染 sh-NC+sh-NC、sh-LINC00887+sh-NC、sh-NC+sh-NC+sh-UPF1 或 sh-LINC00887+sh-UPF1。(A) qRT-PCR 检测各组细胞中 UPF1、LDH-A、HK2 和 GLUT1 的 mRNA 水平。(B) 免疫印迹评估各组细胞中 UPF1、LDH-A、HK2 和 GLUT1 的蛋白水平。将 sh-NC + sh-NC、sh-LINC00887 + sh-NC 或 sh-LINC00887 + sh-UPF1 分别转染至 786-O 细胞,(C) 使用 Seahorse 能量代谢分析仪检测各组细胞的 ECAR,计算糖酵解值、糖酵解能力和糖酵解储备。(D) 使用 Seahorse 能量代谢分析仪基于基础呼吸、ATP 生成和最大呼吸评估各组细胞的 OCR。使用试剂盒检测葡萄糖消耗量 (E)、乳酸生成量 (F) 和 ATP 生成量 (G)。*p < 0.05。ccRCC,透明细胞肾细胞癌;UPF1,上游移码蛋白 1;qRT-PCR,定量逆转录聚合酶链反应;LDH-A,乳酸脱氢酶 A;HK2,己糖激酶 2;GLUT1,葡萄糖转运蛋白 1;ECAR,细胞外酸化率;OCR,耗氧率;ATP,三磷酸腺苷。

进一步实验显示,在sh-UPF1处理的786-O细胞中加入糖酵解抑制剂2-DG后,LDH-A等糖酵解蛋白水平及巨噬细胞M2极化标志CD206+比例受到调控;而在Caki-1细胞中过表达UPF1,则抑制M2巨噬细胞极化,并提升CD8+ T细胞的肿瘤抑制功能。流式细胞术与LDH释放实验表明,UPF1可增强CD8+ T细胞对ccRCC细胞的细胞毒性。
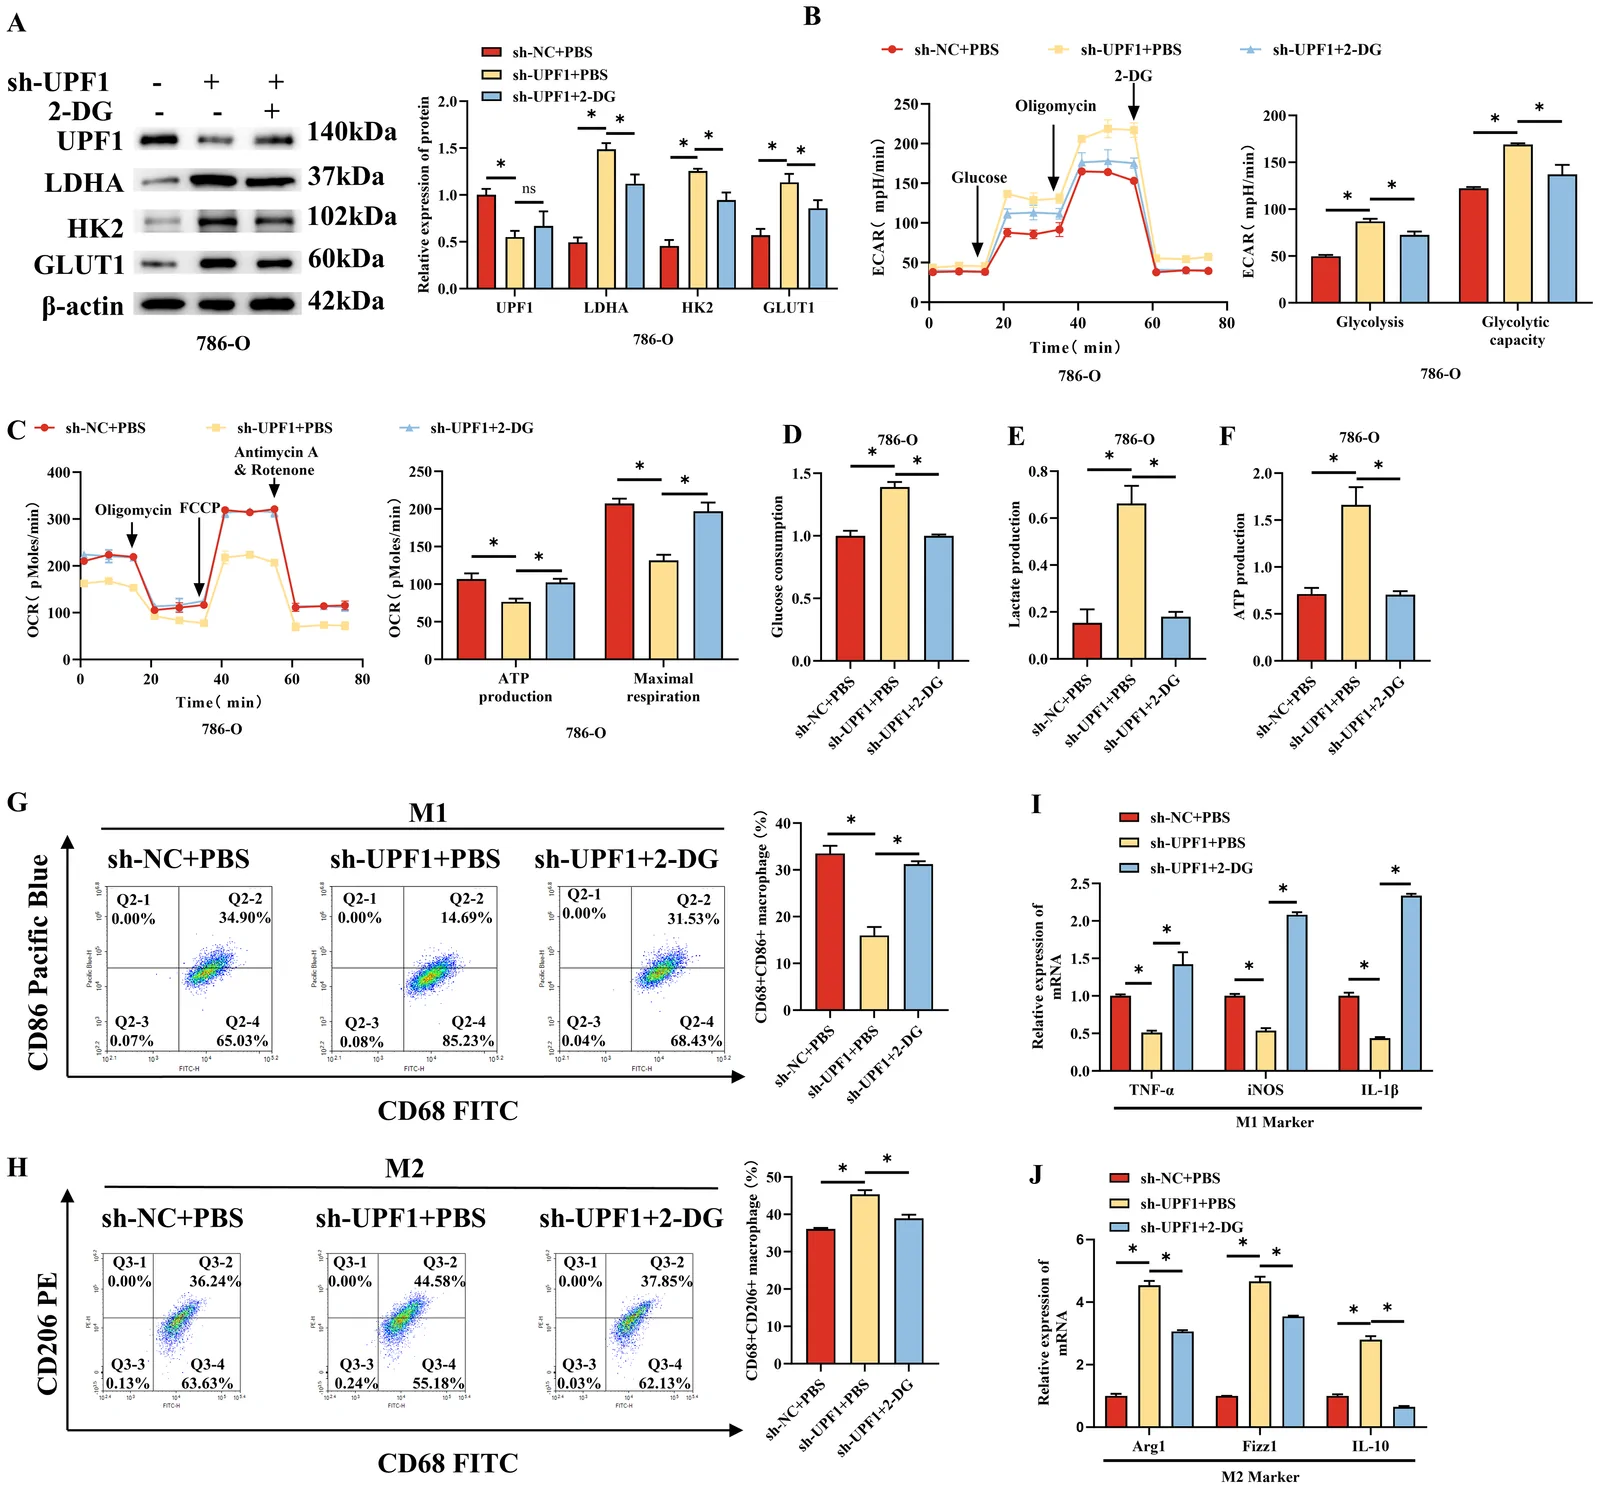
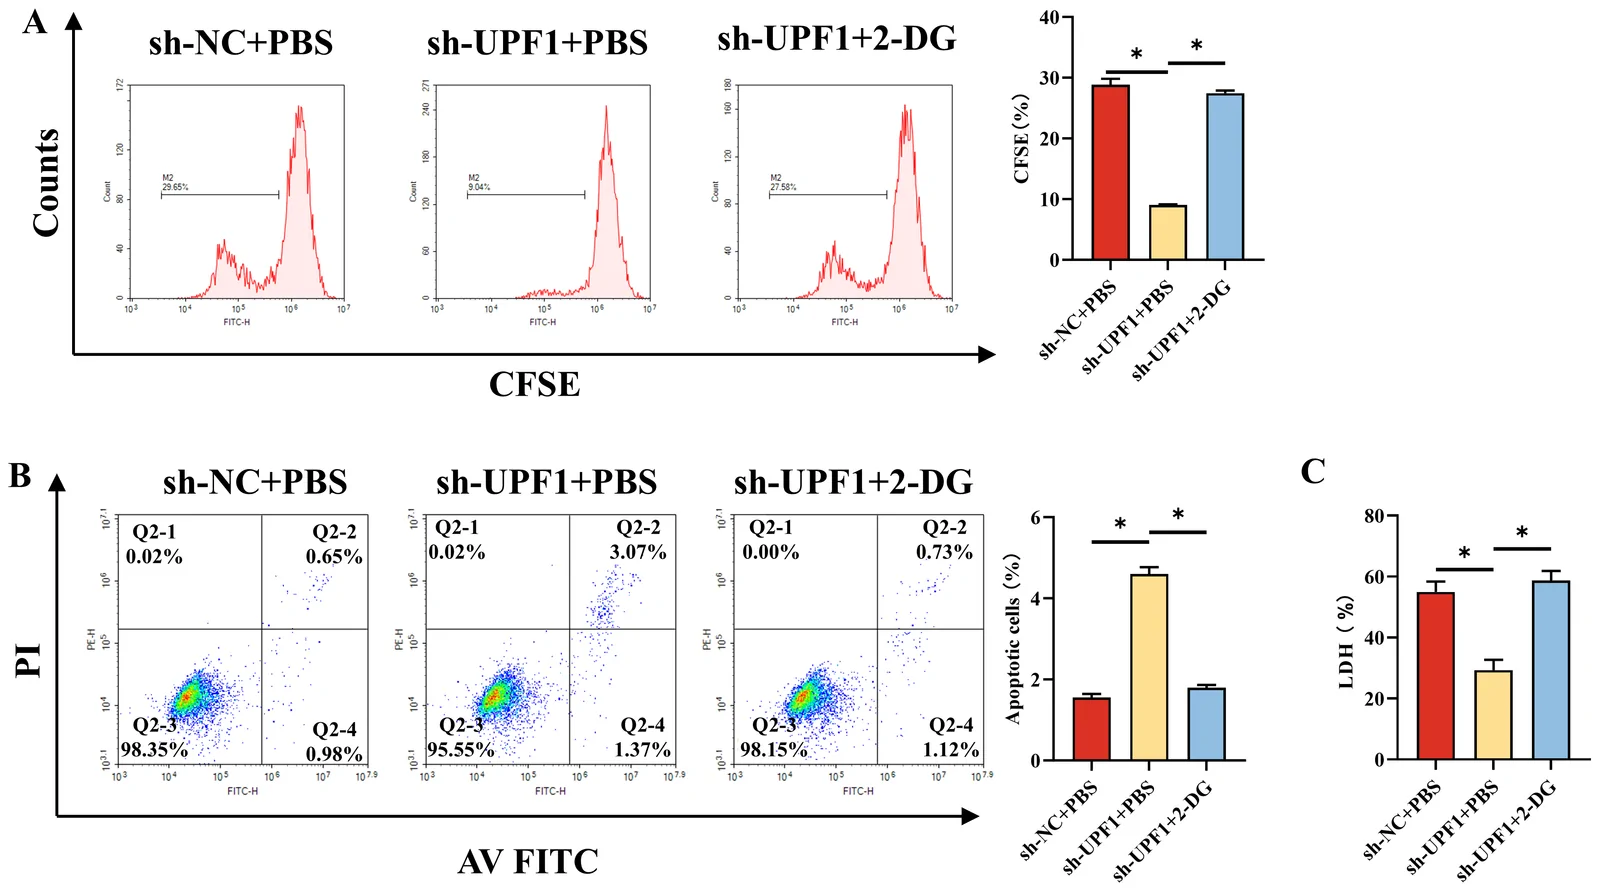
Figure 7
Figure 7 UPF1 调控 ccRCC 中有氧糖酵解以抑制巨噬细胞 M2 极化,786-O 细胞分组为 sh-NC+PBS、sh-UPF1+PBS 或 sh-UPF1 + 2-DG。(A) 免疫印迹检测各组细胞中 UPF1、LDH-A、HK2 和 GLUT1 的蛋白水平。(B) Seahorse 细胞外流量分析仪检测各组 ECAR,计算糖酵解速率、糖酵解能力和糖酵解储备。(C) Seahorse 细胞外流量分析仪检测 OCR,计算基础呼吸、ATP 生成和最大呼吸。(D–F) 使用检测试剂盒测定葡萄糖消耗量 (D)、乳酸生成量 (E) 和 ATP 生成量 (F)。用不同处理的 Caki-1 细胞的条件培养基培养 M0 巨噬细胞,(G, H) 流式细胞术定量 M1 巨噬细胞 (CD68+CD86+) 和 M2 巨噬细胞 (CD68+CD206+)。(I, J) qRT-PCR 分析 M1 标志物 [TNF-α、iNOS、IL-1β;(I)] 和 M2 标志物 [Arg1、Fizz1、IL-10;(J)]。*,p < 0.05。cRCC,透明细胞肾细胞癌;UPF1,上游移码蛋白 1;2-DG,2-脱氧-D-葡萄糖;LDH-A,乳酸脱氢酶 A;HK2,己糖激酶 2;GLUT1,葡萄糖转运蛋白 1;ECAR,细胞外酸化率;OCR,耗氧率;ATP,三磷酸腺苷;CD68,分化簇 68;CD86,分化簇 86;CD206,C 型甘露糖受体 1;TNF-α,肿瘤坏死因子-α;iNOS,诱导型一氧化氮合酶;IL-1β,白细胞介素-1β;Arg1,精氨酸酶 1;Fizz1,炎症区发现蛋白 1;IL-10,白细胞介素-10。
Figure 8
Figure 8 ccRCC 中过表达 UPF1 抑制 M2 巨噬细胞极化并增强 CD8+ T 细胞的肿瘤抑制功能,Caki-1 细胞分组为 sh-NC+PBS、sh-UPF1+PBS 或 sh-UPF1 + 2-DG,条件培养基用于培养和极化 M0 巨噬细胞。极化后的巨噬细胞与活化的 CD8+ T 细胞共培养。(A) CFSE 评估 CD8+ T 细胞增殖能力。(B) 流式细胞术检测不同共培养体系中 CD8+ T 细胞的凋亡率。(C) 将培养体系中的 CD8+ T 细胞与正常 Caki-1 细胞共培养,LDH 法测定 CD8+ T 细胞的细胞毒性作用。*,p < 0.05。cRCC,透明细胞肾细胞癌;UPF1,上游移码蛋白 1;2-DG,2-脱氧-D-葡萄糖;CFSE,羧基荧光素二醋酸琥珀酰亚胺酯。

研究还利用TCGA-KIRC数据分析了UPF1在不同ISUP分级、TNM分期和病理分期中的表达,并按UPF1中位表达值将患者分为高、低表达组,绘制Kaplan–Meier生存曲线以评估总生存(OS)和无进展生存(PFS)。结果提示,UPF1表达降低与ccRCC恶性进展相关。此外,基于CIBERSORT-ABS算法计算LINC00887与M2巨噬细胞的相关性,进一步支持了LINC00887–UPF1–糖酵解–M2极化轴在ccRCC免疫逃逸中的作用。
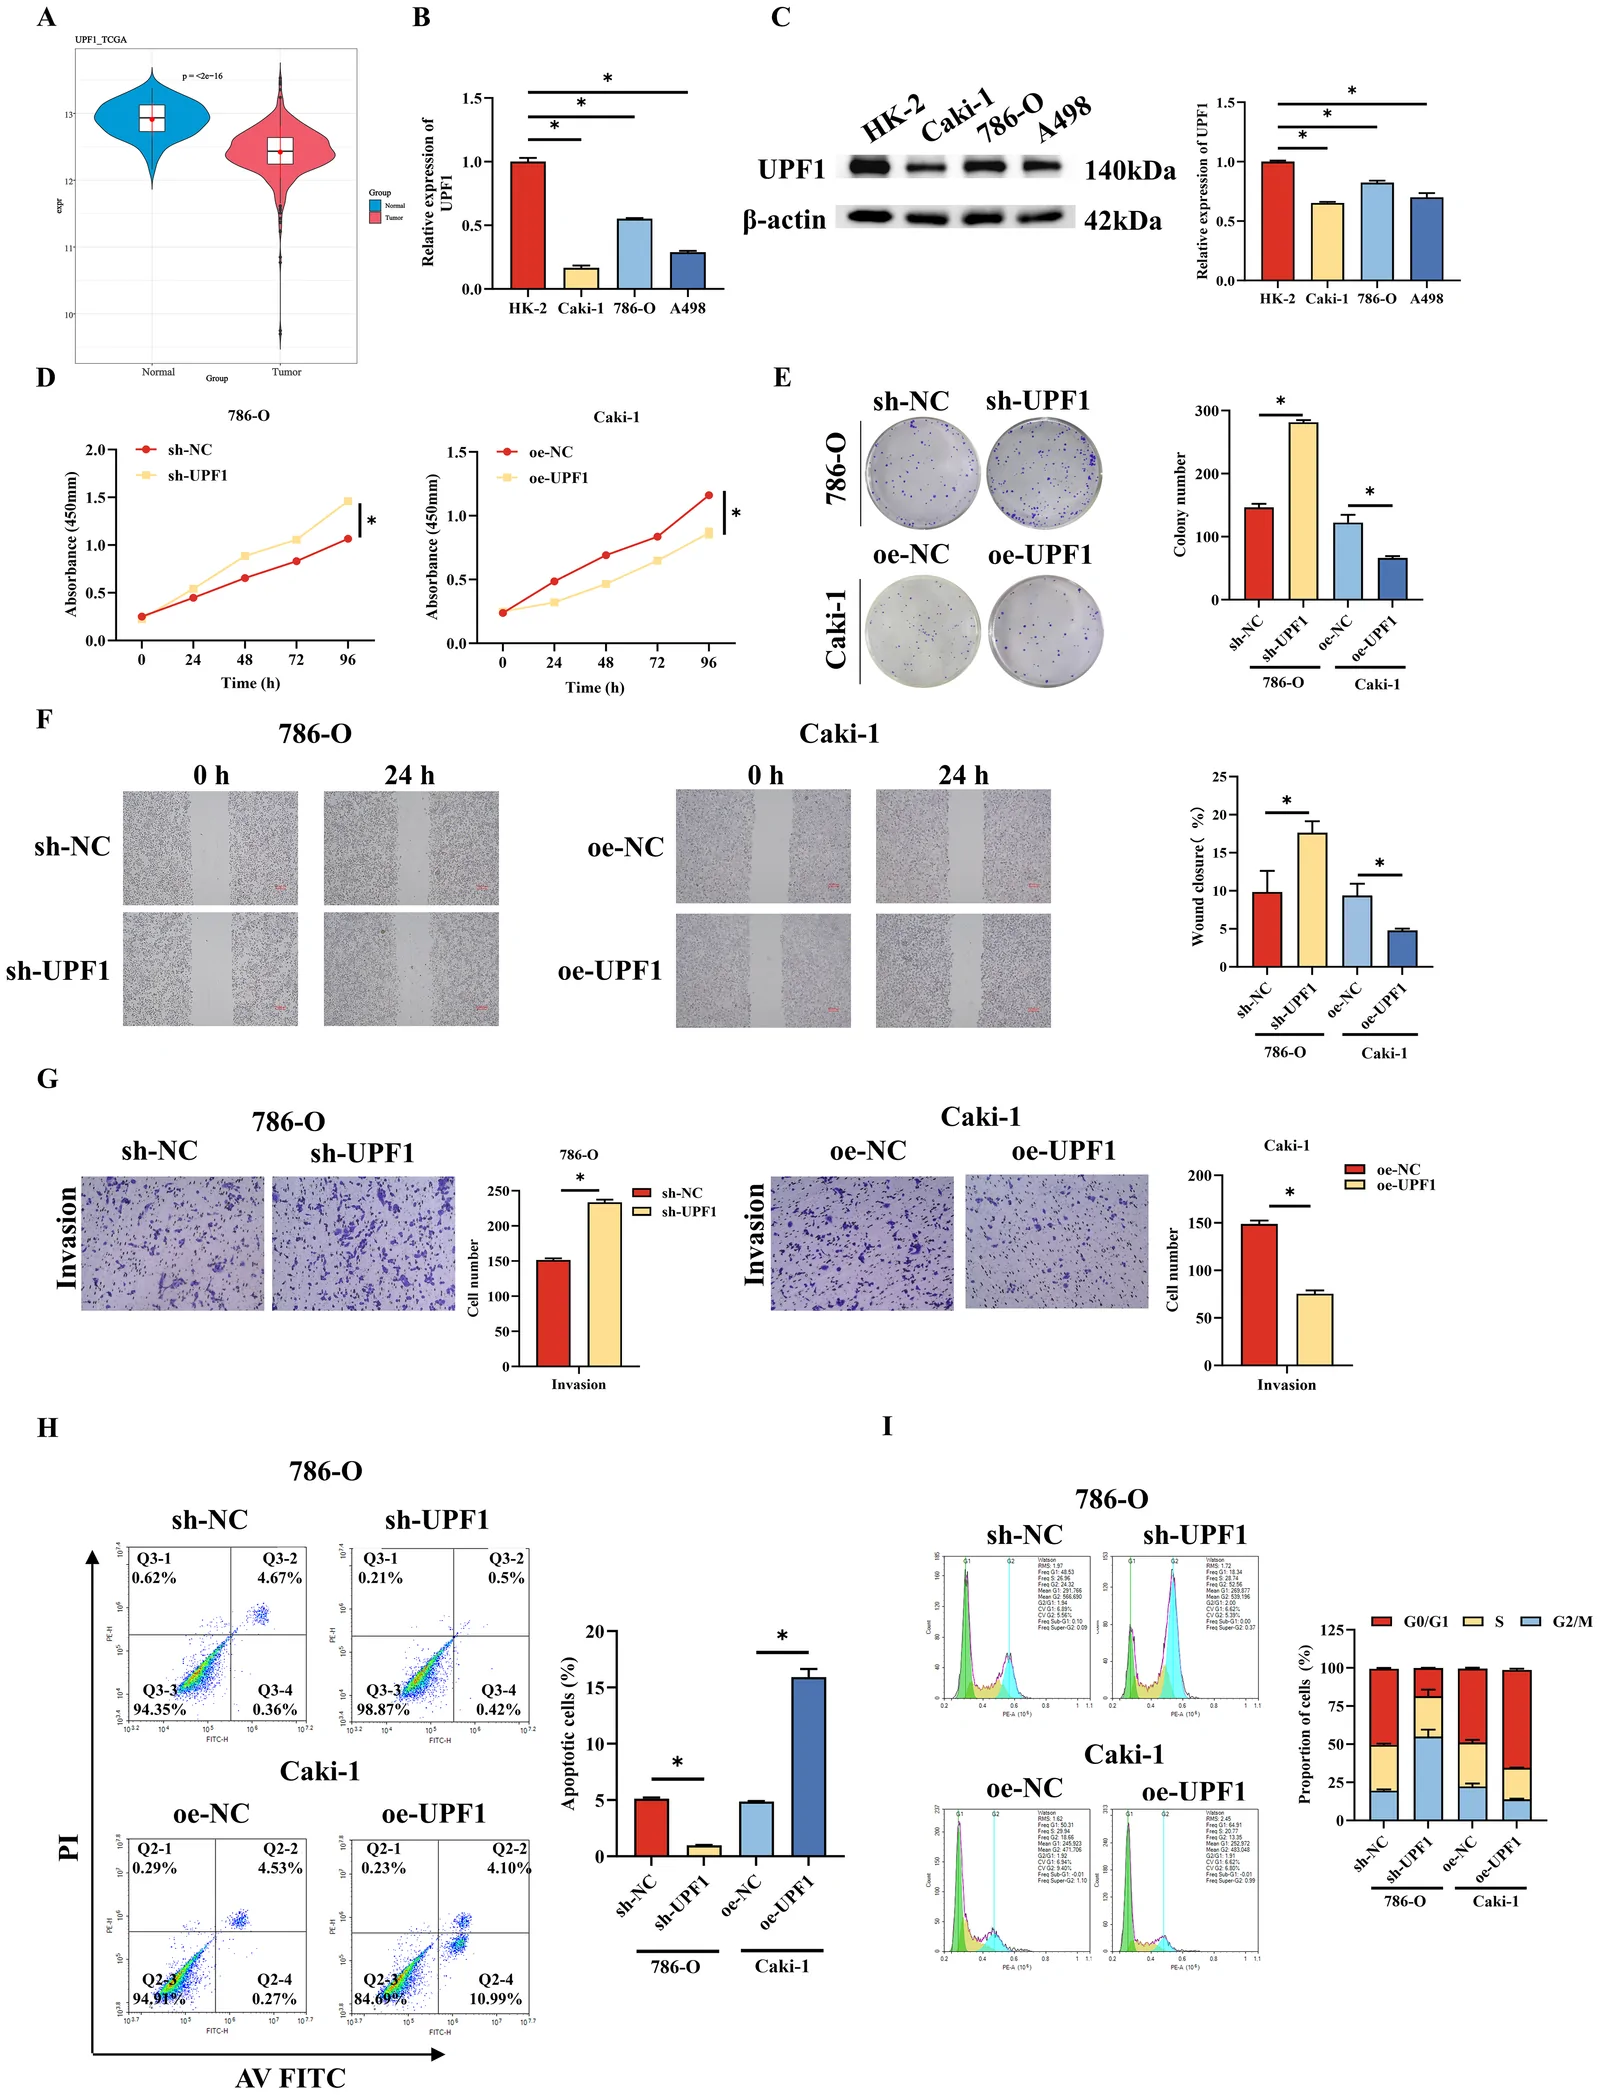
Figure 5
Figure 5 LINC00887 介导的 UPF1 抑制 ccRCC 恶性进展,(A) 基于 TCGA-KIRC 数据集分析 ccRCC 肿瘤组织与癌旁正常组织中 UPF1 的 mRNA 水平。(B) qRT-PCR 检测 HK-2、Caki-1、786-O 和 A498 细胞中 UPF1 mRNA。(C) 免疫印迹评估肾细胞系中 UPF1 蛋白。(D) CCK-8 法检测表达 sh-NC 或 sh-UPF1 的 786-O 细胞以及表达 oe-NC 或 oe-UPF1 的 Caki-1 细胞的细胞活力。(E) 集落形成实验测定转染细胞的细胞增殖。(F) 划痕实验评估细胞迁移。(G) Transwell 评估细胞侵袭。(H) 流式细胞术分析不同细胞组的凋亡。(I) 流式细胞术检测各细胞组的细胞周期分布。*,p < 0.05。ccRCC,透明细胞肾细胞癌;UPF1,上游移码蛋白 1。qRT-PCR,定量逆转录聚合酶链反应;TCGA,癌症基因组图谱;KIRC,肾透明细胞癌。

方法亮点:从单细胞测序到体内外多维度验证

该研究在方法学上具有多层次、多组学整合的特点。首先,研究者对来自福建省立医院伦理委员会批准(No. K2025-06-010)的2对ccRCC肿瘤与正常组织样本进行单细RNA测序(scRNA-seq)。组织经PBS冲洗、剪碎至1–2 mm片段后,用组织解离缓冲液消化45分钟,依次通过70 μm和40 μm滤网,低速离心收集细胞,并以红细胞裂解液去除红细胞。使用10× Chromium Single Cell 3′ Reagent Kit(V3)进行单细胞捕获与文库构建,目标每样本捕获10,000个细胞;在Illumina NovaSeq 6000平台上进行PE 150 bp测序,每个样本产生约100 Gb原始数据。

在生物信息学处理方面,研究使用scMetabolism包中的VISION算法结合KEGG代谢基因集量化单细胞代谢活性;利用Seurat包进行标准化(NormalizeData)、高变基因识别(FindVariableFeatures),并通过IntegrateData与FindIntegrationAnchors(CCA)整合数据、消除批次效应。FindClusters将所有细胞划分为16个簇,UMAP用于可视化,FindAllMarkers识别簇特异性差异表达基因,并依据经典标志基因注释细胞类型:成纤维细胞(COL1A1、DCN、FGF7)、B细胞(CD79A、MS4A1、CD24)、内皮细胞(CLDN5、CDH5、PECAM1、VWF)、上皮细胞(EPCAM、KRT18、KRT19、CD24)、T/NK细胞(CD3D、CD8A、GZMK、KLRD1、GNLY)、肥大细胞(TPSAB1、TPSB2)、单核/巨噬细胞(CD14、CD68、ITGAM)。CellChat v2(v2.2.0)分别重建肿瘤与癌旁组织的细胞间通讯网络。
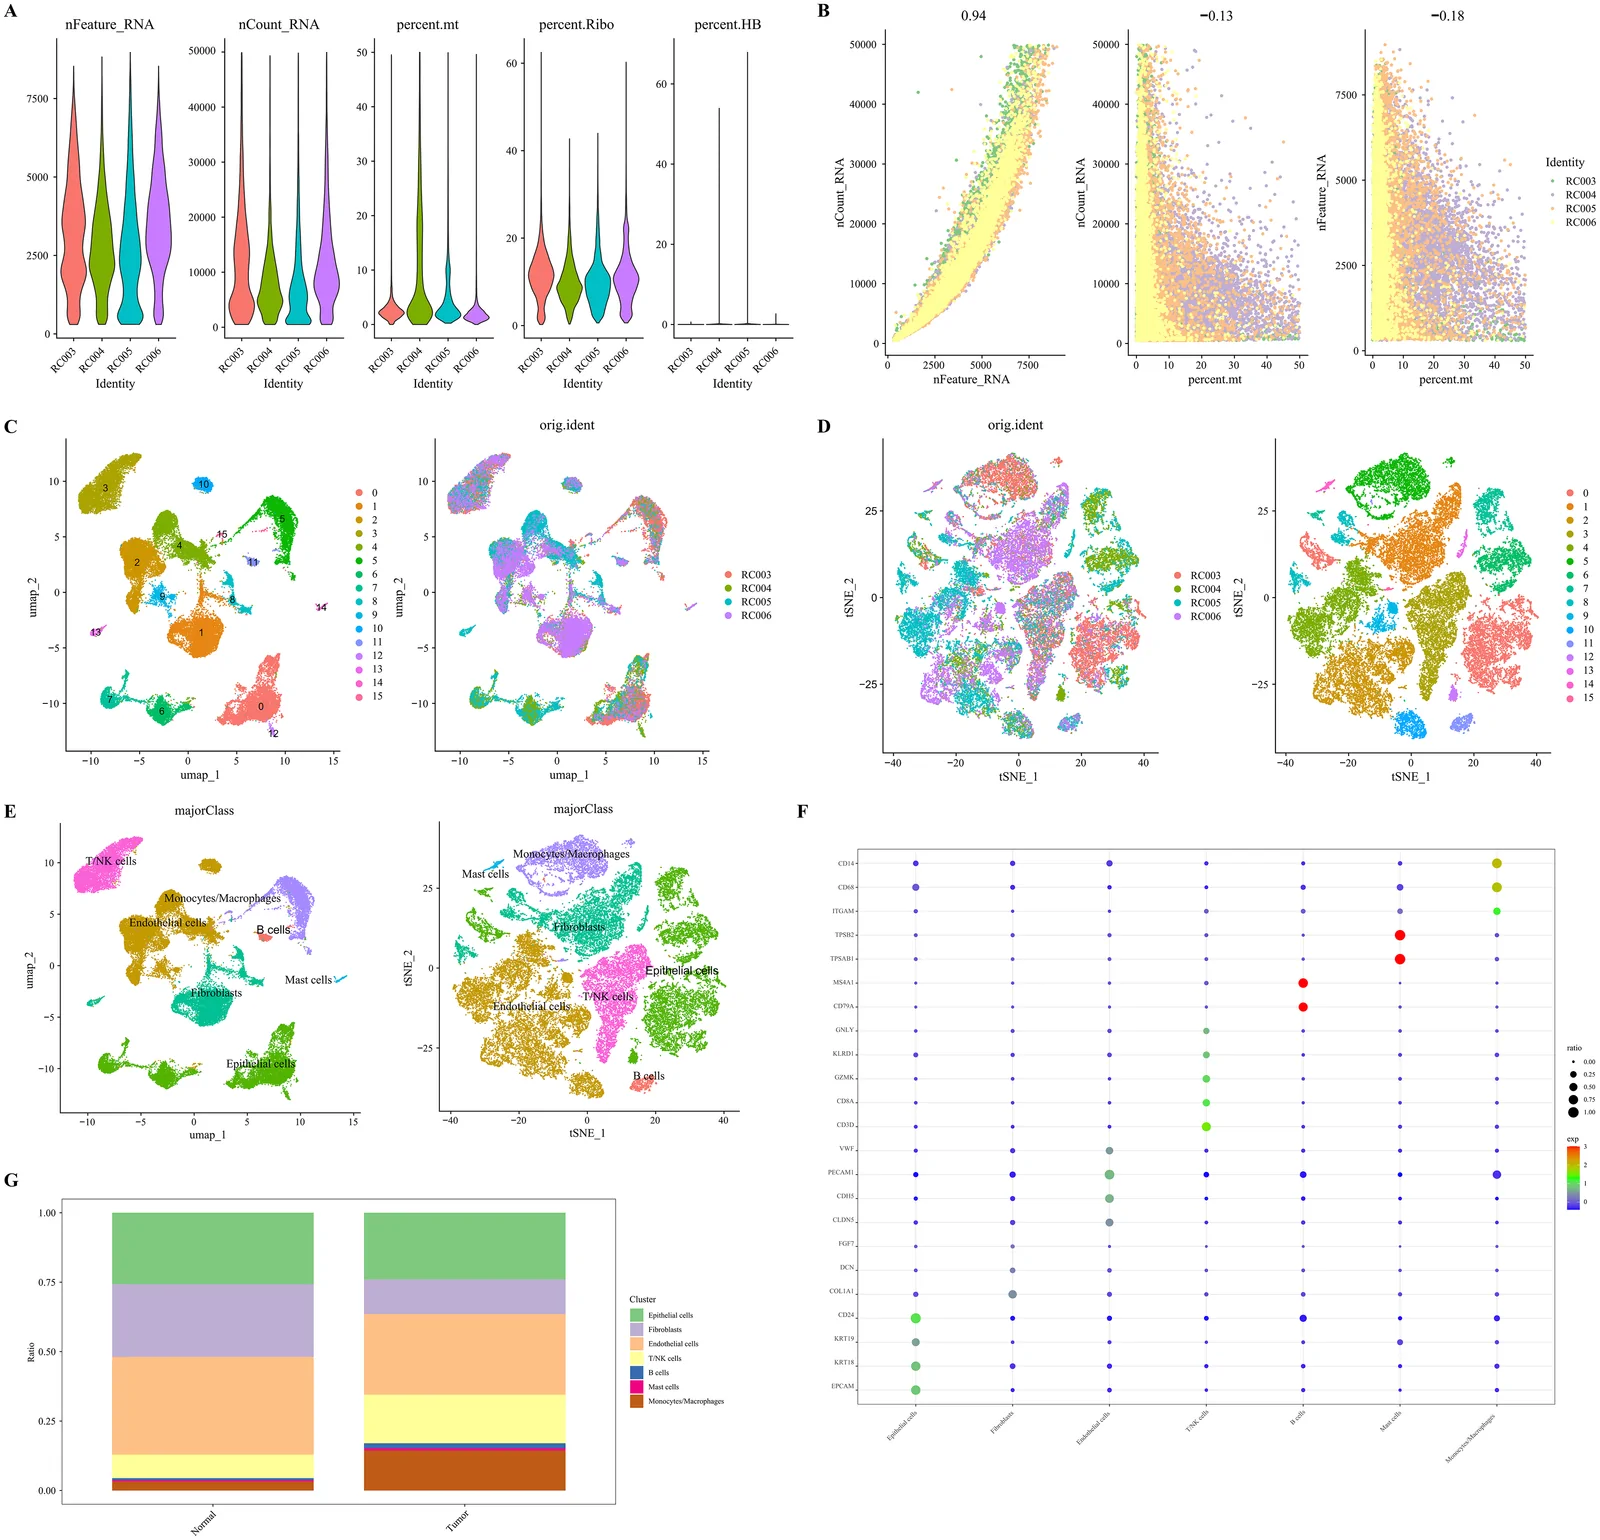
Figure 4
Figure 4 来源于 ccRCC 及癌旁肿瘤组织的 scRNA-seq 概览,(A, B) 核糖体基因、过滤后特征、线粒体基因、计数和红细胞基因的质量控制图,筛选标准为 nFeature_RNA < 10,000 且 nCount_RNA < 50,000 且 percent.mt < 50。细胞聚类结果的 Umap (C) 和 tSNE (D) 图。(E) 7 种主要细胞亚型的 Umap(左)和 tSNE(右)图。(F) 7 种主要细胞亚型标志物的气泡图。(G) ccRCC 肿瘤组织与癌旁正常组织中七种主要细胞亚型的比例。ccRCC,透明细胞肾细胞癌。

在实验验证层面,研究使用了人肾近端小管上皮细胞HK-2,ccRCC细胞系Caki-1、786-O、A498,小鼠RCC细胞系Renca,人单核细胞及原代CD8+细胞毒性T细胞。通过qRT-PCR、免疫印迹(检测LDH-A、HK2、GLUT1、UPF1、β-actin)、Seahorse XF Pro Analyzer(ECAR与OCR)、葡萄糖消耗与乳酸含量测定、ATP检测、流式细胞术(CD68、CD86、CD206、F4/80、CD3、CD8等)、CFSE增殖实验、LDH细胞毒性实验、Transwell侵袭、划痕愈合、克隆形成以及RIP实验,系统解析了分子机制。

体内实验方面,研究构建了同源移植瘤模型:将24只6周龄雌性BALB/c小鼠随机分组,皮下注射携带sh-NC或sh-LINC00887的Renca细胞;一周后再分别用sh-NC或sh-UPF1慢病毒处理,每7天记录肿瘤体积,观察5周后取瘤称重并进行免疫组化(LDH-A、UPF1、Ki67)与免疫荧光(CD206)分析。动物实验遵循ARRIVE指南及福州大学附属省立医院动物伦理委员会协议(IACUC-FPH-SL-20240220[0076])。
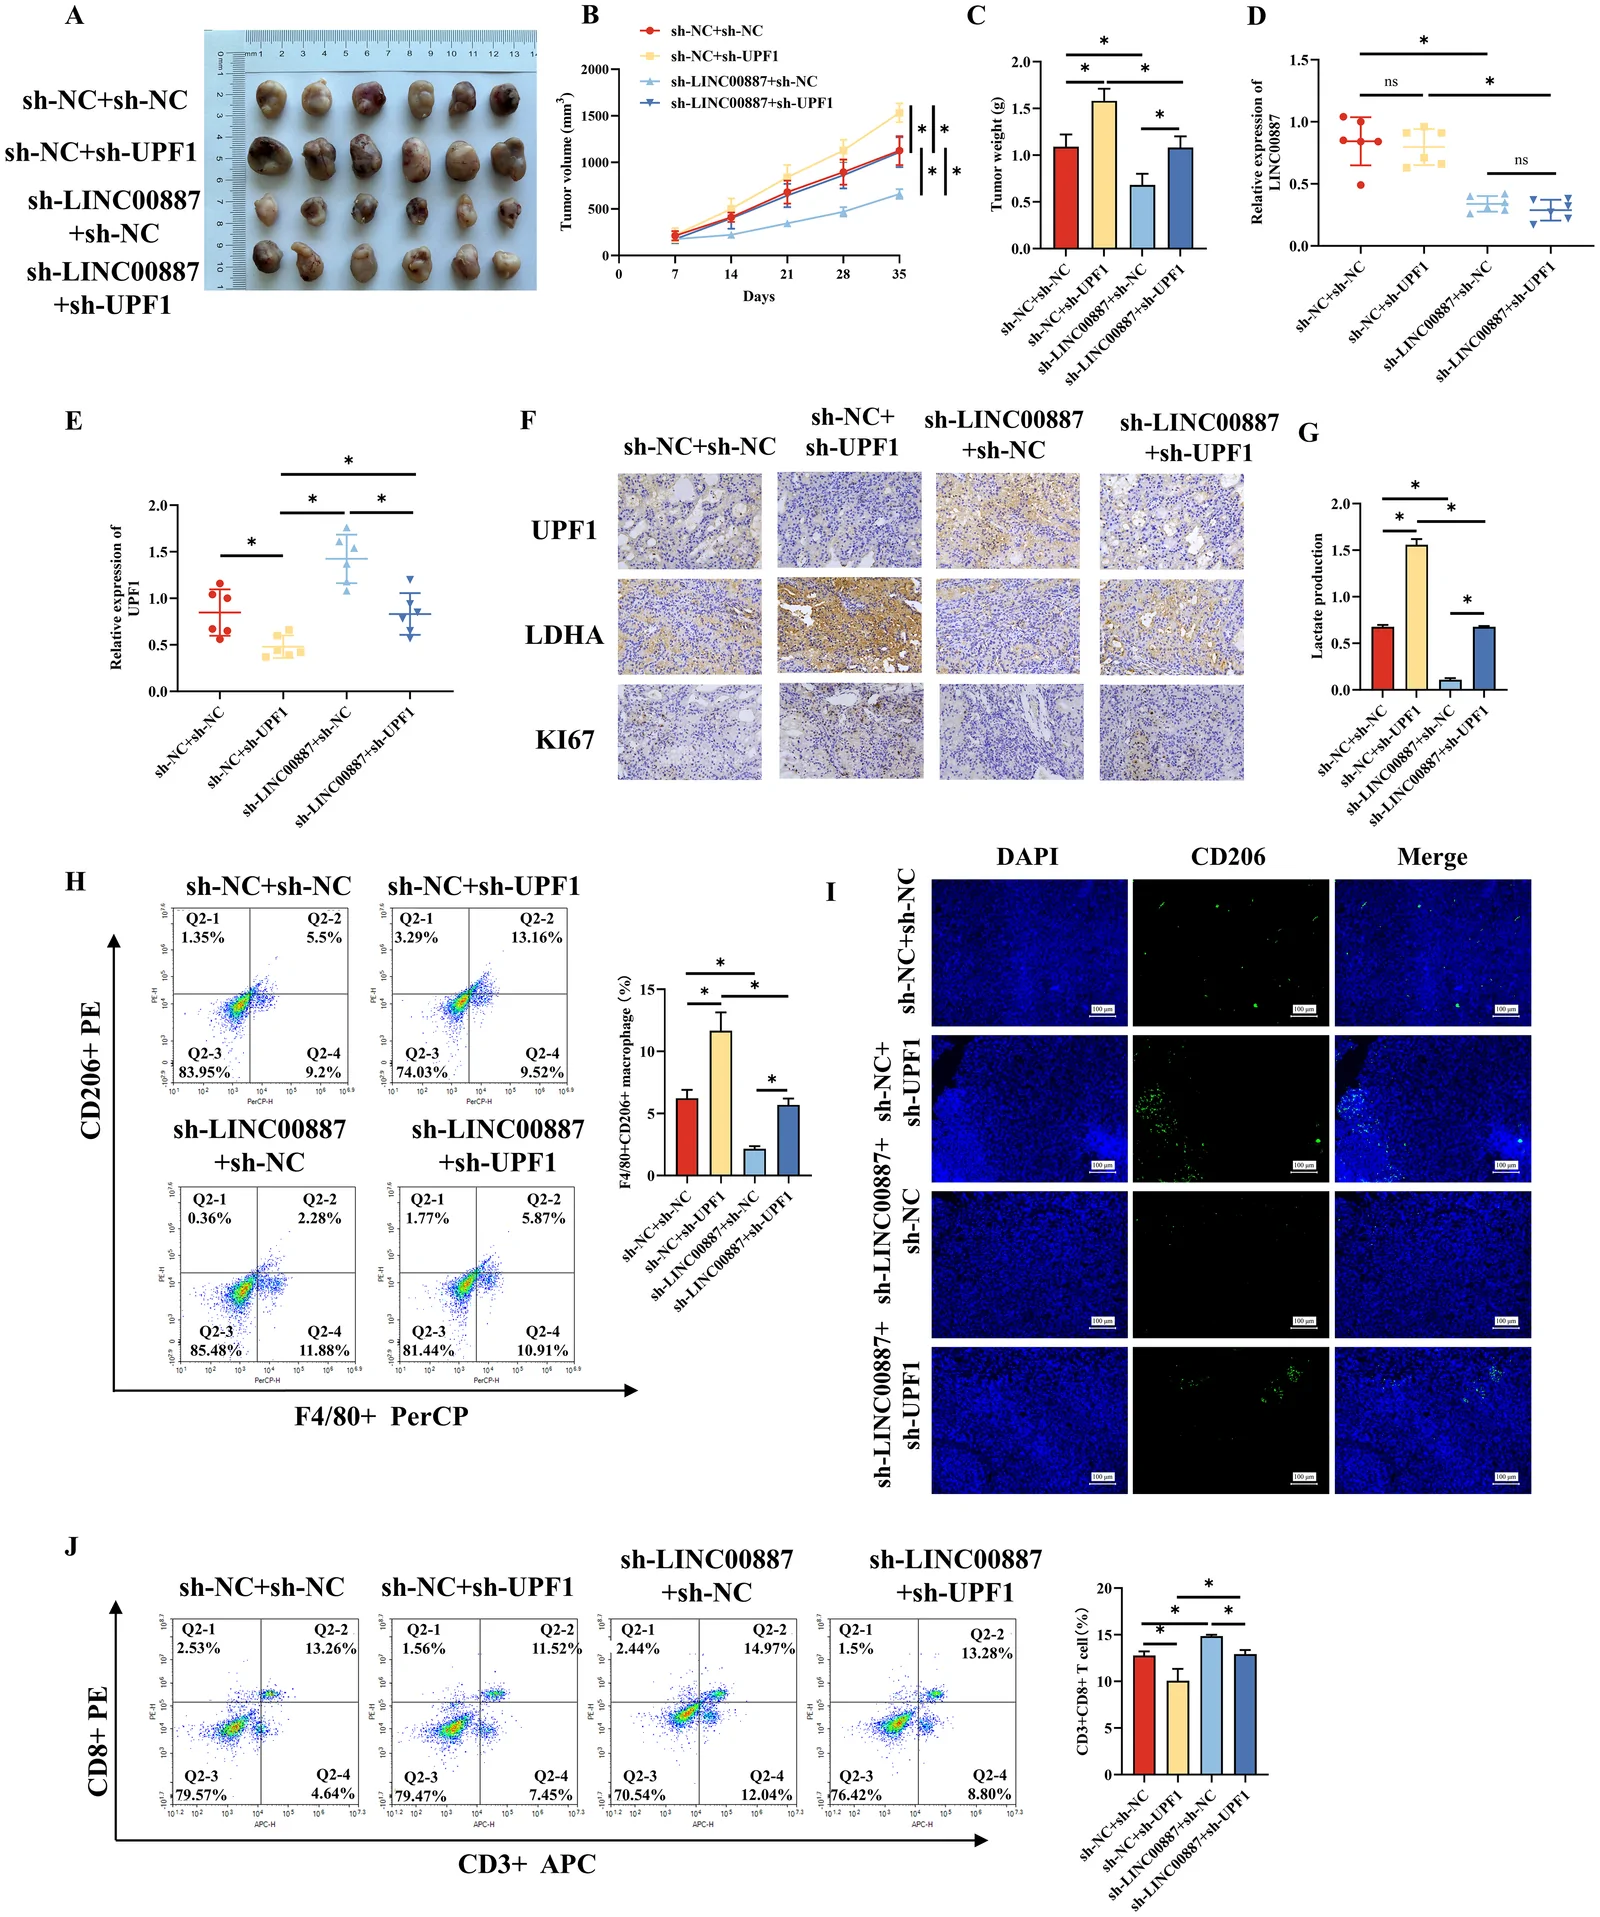
Figure 9
Figure 9 LINC00887/UPF1 介导的有氧糖酵解导致乳酸蓄积并促进 ccRCC 体内免疫逃逸,通过向 BALB/c 小鼠注射表达 sh-NC 或 sh-LINC00887 的 Renca 细胞建立同系肿瘤模型,随后用 sh-NC 或 sh-UPF1 慢病毒处理。A-C:评估肿瘤大小 (A)、体积 (B) 和重量 (C)。(D, E) qRT-PCR 分析 LINC00887 (D) 和 UPF1 (E) mRNA 水平。(F) IHC 分析 UPF1、LDH-A、KI67 蛋白水平。(G) 试剂盒检测肿瘤中乳酸水平。(H) 流式细胞术检测 M2 巨噬细胞 (F4/80+CD206+) 比例。(I) CD206+ 巨噬细胞的免疫荧光检测。(J) 肿瘤组织中 CD8+ T 细胞 (CD3+CD8+) 比例。ns,无显著差异。*p < 0.05。cRCC,透明细胞肾细胞癌;UPF1,上游移码蛋白 1;LDH-A,乳酸脱氢酶 A;CD206,C 型甘露糖受体 1;CD3,分化簇 3;CD8,分化簇 8。

应用意义:为ccRCC免疫治疗提供新靶点

该研究的结论可以概括为:LINC00887通过抑制UPF1,提升ccRCC中的糖酵解活性,诱导M2巨噬细胞极化,并损害CD8+ T细胞抗击肿瘤的效果。这一发现拓展了人们对“UPF1表达降低可重编程糖酵解代谢、导致免疫抑制性TME增强”的机制理解。

从科研角度看,LINC00887/UPF1轴将lncRNA、代谢重编程与肿瘤免疫微环境三者联系起来,为ccRCC中“代谢–免疫”交互研究提供了具体范式。从临床转化角度看,靶向LINC00887或恢复UPF1功能,有望逆转M2型巨噬细胞主导的免疫抑制状态,增强CD8+ T细胞杀伤能力,从而改善ccRCC患者对免疫治疗的响应。尽管目前仍处于机制与动物模型阶段,但该工作为未来开发联合代谢干预与免疫治疗的精准策略奠定了理论基础。

总体而言,这项发表于《Frontiers in Immunology》的研究以单细胞测序为起点,结合TCGA生信分析、体外细胞实验与体内动物模型,清晰描绘了“LINC00887 ↑ → UPF1 ↓ → 有氧糖酵解 ↑ / 乳酸堆积 → M2巨噬细胞极化 → CD8+ T细胞功能受损”的信号链条,是ccRCC肿瘤微环境研究中一项具有启发性的进展。

本文图片转载自 PMC 开放获取全文,仅供学习参考,请以原文为准。
联系地址

山东省济南市章丘区文博路2号

齐鲁师范学院 Genelibs生信实验室

山东省济南市高新区舜华路750号

大学科技园北区F座4单元2楼

电话: 0531-88819269

微信公众号

关注微信订阅号,实时查看信息,关注医学生物学动态。


商务邮箱

E-mail: [email protected]