原文:Altered oligodendroglial cell development and increased myelination in SCN2A gain-of-function-linked epilepsy.
期刊:Acta neuropathologica communications(影响因子 6.5) |
PubMed | PMC 全文(含 PDF)
研究背景:不只是神经元,SCN2A相关癫痫还有“白质谜团”
在遗传性癫痫综合征中,约四分之一与离子通道基因变异有关。其中,SCN2A 编码电压门控钠通道 NaV1.2,是大脑发育过程中启动和传播神经元动作电位的关键分子。SCN2A 变异可导致一系列神经系统疾病,包括婴儿癫痫性脑病(IEE)、自限性家族性新生儿-婴儿癫痫(SeLFNIE)、自闭症谱系障碍/智力障碍(ASD/ID),以及更严重的发育性和癫痫性脑病(DEEs)。
这些变异分为“功能获得(gain-of-function, GoF)”和“功能丧失(loss-of-function)”两类。功能获得型 SCN2A 变异会引起新生儿或婴儿期起病的癫痫谱系,从较轻的自限性表型到严重的 DEEs 不等。过去研究多聚焦于 NaV1.2 对神经元兴奋性和神经环路病理的驱动作用;然而,临床 MRI 与神经病理研究经常发现,携带致病性离子通道变异的癫痫患者存在白质异常,包括髓鞘化延迟、髓鞘体积减少和广泛白质信号异常。
髓鞘由少突胶质细胞形成,是动作电位沿轴突跳跃式传导的结构基础。少突胶质前体细胞(OPCs)占脑细胞的 5–10%,终生保持增殖并分化为成熟少突胶质细胞的能力。神经元电活动可诱导髓鞘形成与重塑;反过来,OPCs 也接受谷氨酸能和 GABA 能突触输入调控。此前小鼠研究表明,少突胶质细胞中特异性敲除 Scn2a 会导致髓鞘缺陷、髓鞘变薄、听觉脑干环路功能受损及感觉超敏。但“功能获得型” SCN2A 变异对少突胶质细胞谱系发育和功能的影响,此前尚未被系统研究。
人类复发突变 SCN2A p.(Ala263Val)(A263V) 导致 NaV1.2 功能获得,临床表型跨度极大,从 SeLFNIE、儿童期发作性共济失调,到严重智力障碍、大田原综合征(EIEE)、难治性新生儿癫痫性脑病甚至死亡风险增加。将该变异引入小鼠后,会引起基因剂量依赖的神经元超兴奋和自发性癫痫表型。那么,这种“神经元过度兴奋”是否会波及少突胶质细胞?这正是本研究要回答的问题。
核心发现一:NaV1.2 存在于早期少突胶质细胞谱系,突变改变其电生理与钙信号
研究团队利用单细胞 RNA 测序(scRNA-seq)和免疫细胞化学,系统刻画了 Scn2a 在少突胶质细胞谱系各发育阶段的表达。结果显示,NaV1.2 表达于少突胶质细胞谱系的早期阶段,包括 OPCs 和前髓鞘化少突胶质细胞;但在成熟少突胶质细胞中未检测到 NaV1.2。
在携带 Scn2ap.A263V/+(杂合功能获得)突变的小鼠中,OPCs 的 NaV1.2 表达水平与对照相似,但其电生理特性发生改变:膜片钳记录显示,突变型 OPCs 的稳态失活曲线发生变化(V1/2 从 −62.2 ± 1.2 mV 变为 −56.3 ± 1.4 mV,p = 0.0045),静息膜电位也出现显著差异(−150.5 ± 18.3 mV 对 −205.4 ± 18.6 mV,p = 0.0424;见表2)。同时,突变 OPCs 表现出增强的钠电流和升高的钙瞬变。这说明 SCN2A GoF 变异虽未改变 NaV1.2 在 OPCs 中的表达量,却改变了通道功能状态,并扰动了 OPC 的钙信号活动。
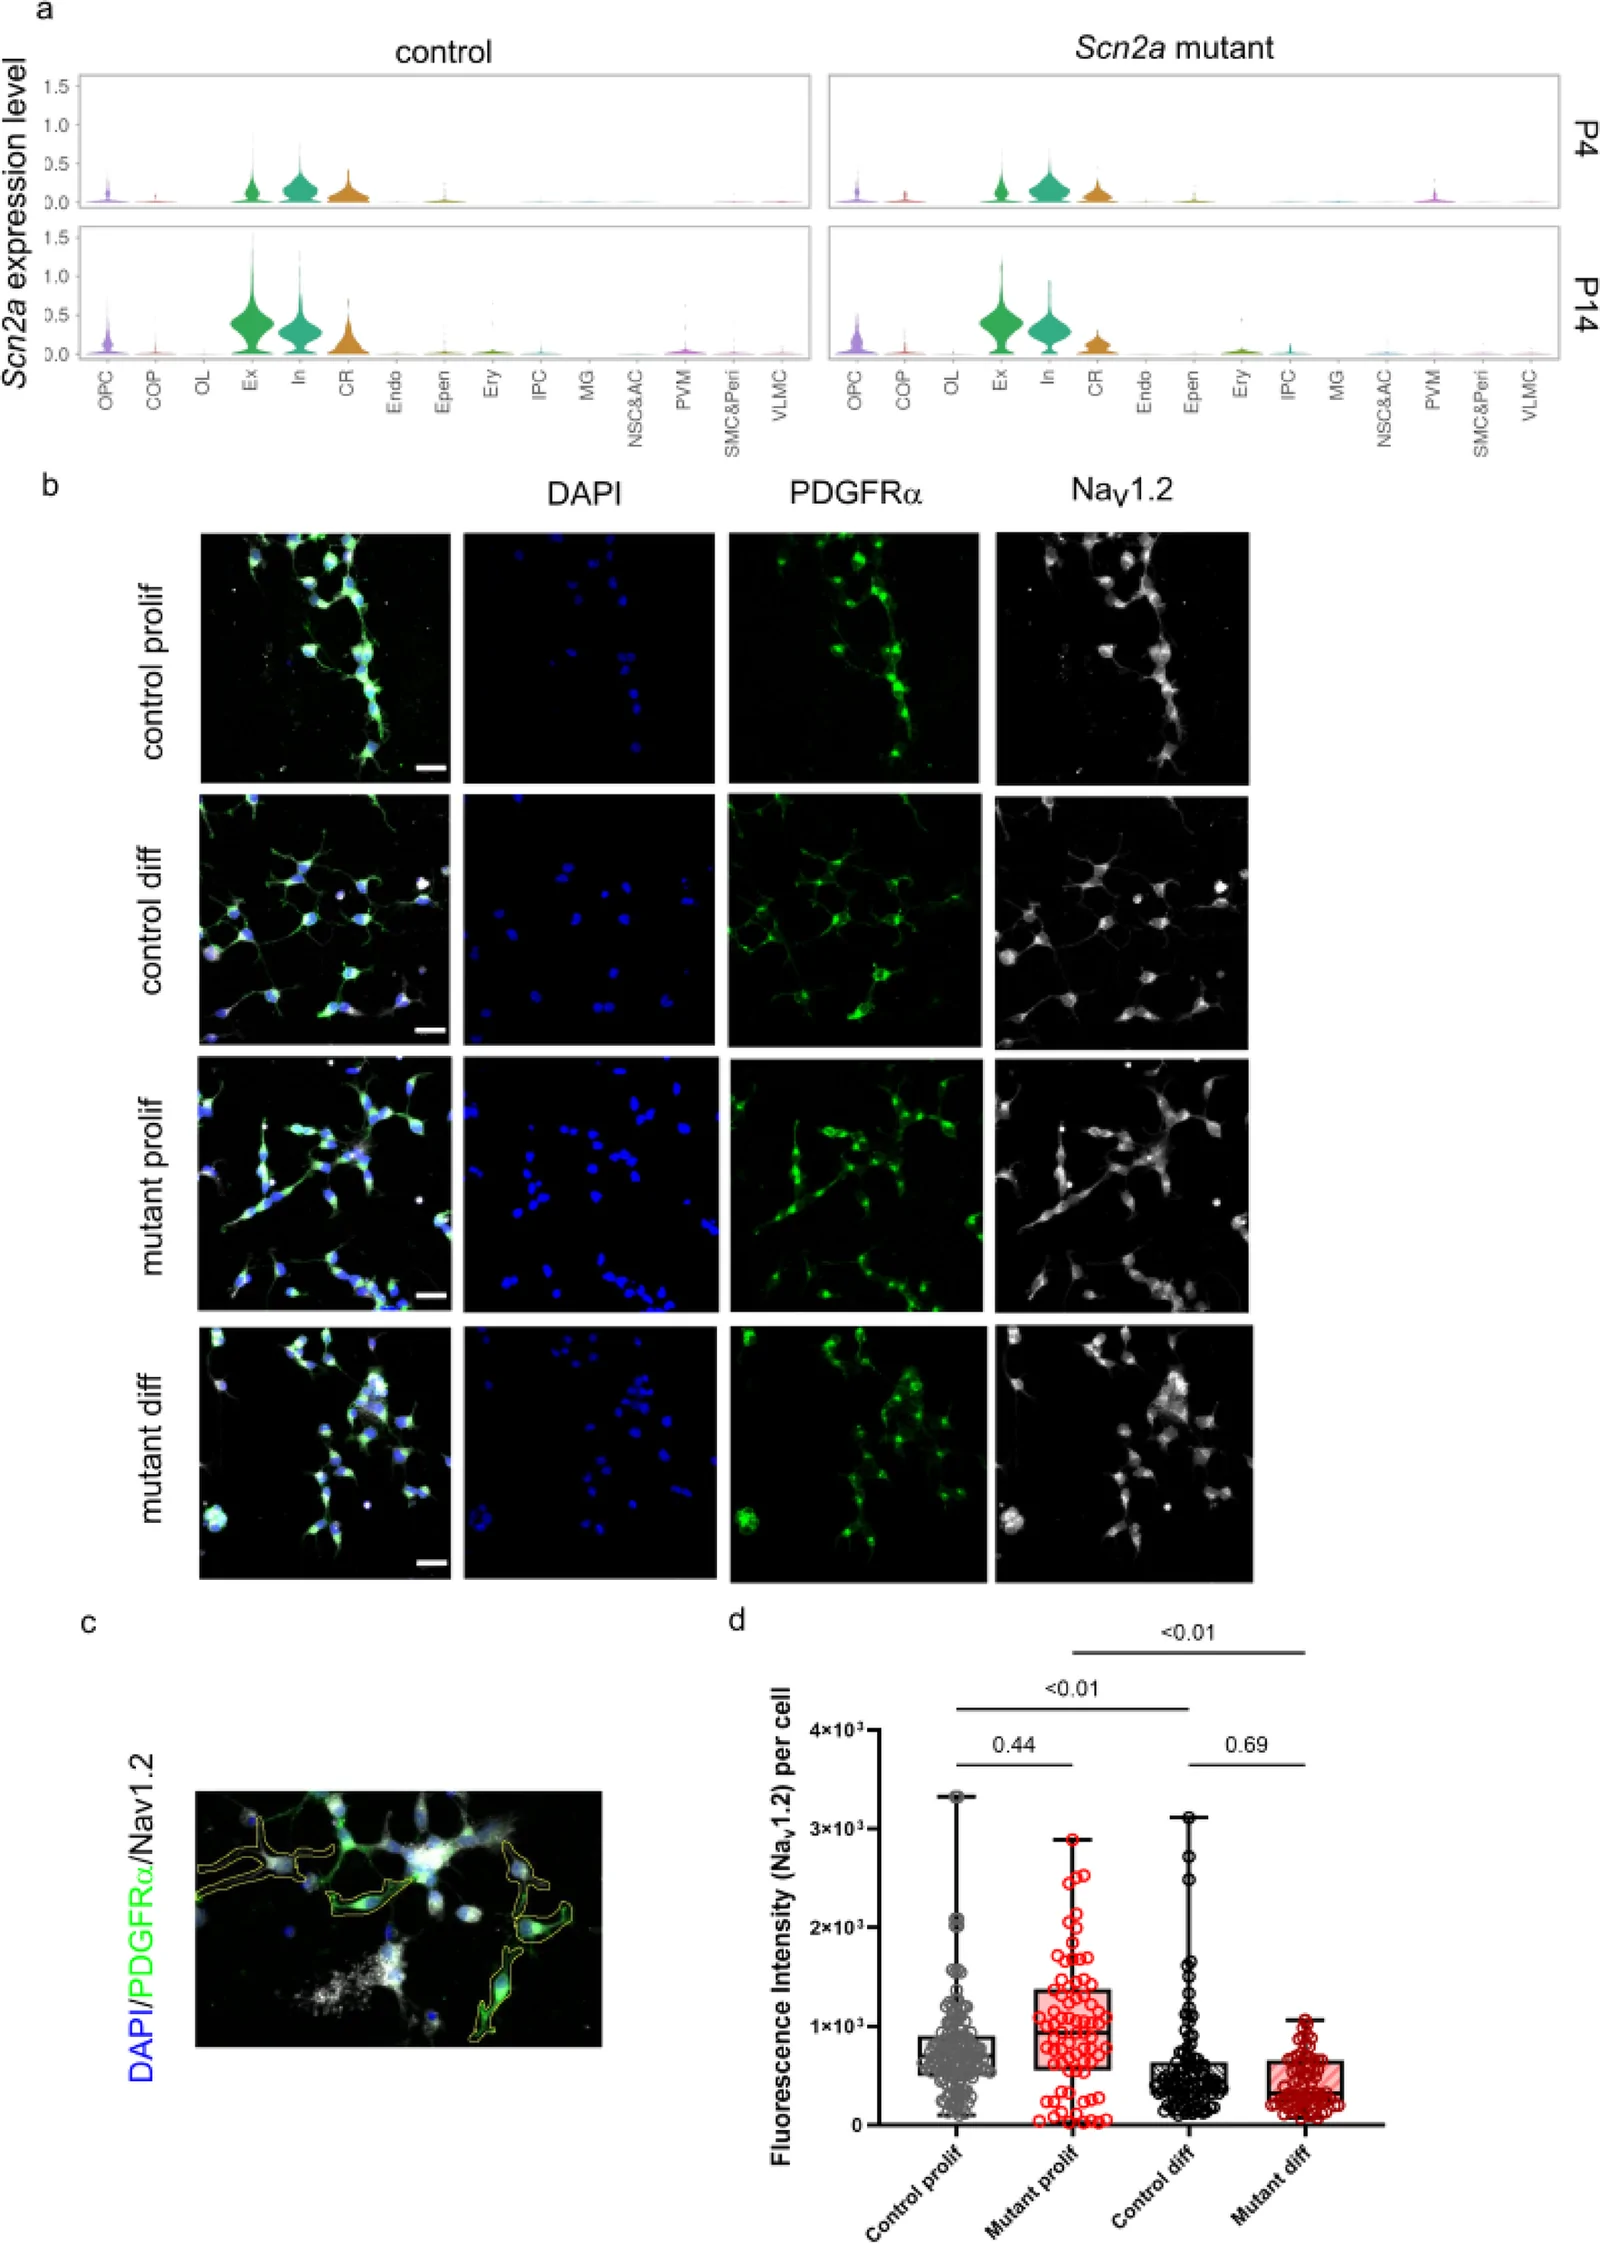 Fig. 3 对照与Scn2ap.A263V/+突变OPC中Nav1.2的表达。a P4和P14时对照与Scn2ap.A263V/+突变小鼠各细胞类型中Scn2a的RNA表达水平。本图所用缩写:OPC 少突胶质前体细胞,COP 定向少突胶质前体细胞,OL 少突胶质细胞,Ex 兴奋性神经元,In 抑制性神经元,CR Cajal-Retzius细胞,Endo 内皮细胞,Epen 室管膜细胞,Ery 红细胞,IPC 中间前体细胞,MG 小胶质细胞,NSC&AC 神经干细胞与星形胶质细胞,PVM 血管周围巨噬细胞,SMC&Peri 平滑肌细胞与周细胞,VLMC 血管与软脑膜细胞。b Nav1.2(灰色)、PDGFRα(绿色)和DAPI(蓝色)的免疫细胞化学染色。OPC在促增殖培养基中培养4天(prolif),或在促增殖培养基中培养2天后转入促分化培养基再培养2天(diff),以利用相应生长因子停止增殖并诱导分化(培养基成分见方法)。NaV1.2在促增殖培养基中的OPC表达,且在从突变和对照小鼠分离的OPC转入促分化培养基后的早期分化阶段仍可检测。比例尺代表25 μm。c 测量荧光强度前勾画少突胶质细胞轮廓的示例。d 荧光强度定量。测量了139个促增殖培养基中的对照OPC、74个促增殖培养基中的突变OPC、94个促分化培养基中的对照OPC和71个促分化培养基中的突变OPC。OPC分离自3次独立实验中的6只对照和5只Scn2ap.A263V/+突变小鼠。采用Kruskal–Wallis检验及Dunn多重比较检验(对照增殖 vs. 突变增殖 p=0.44,对照增殖 vs. 对照分化 p<0.01,突变增殖 vs. 突变分化 p<0.01,对照分化 vs. 突变分化 p=0.69)
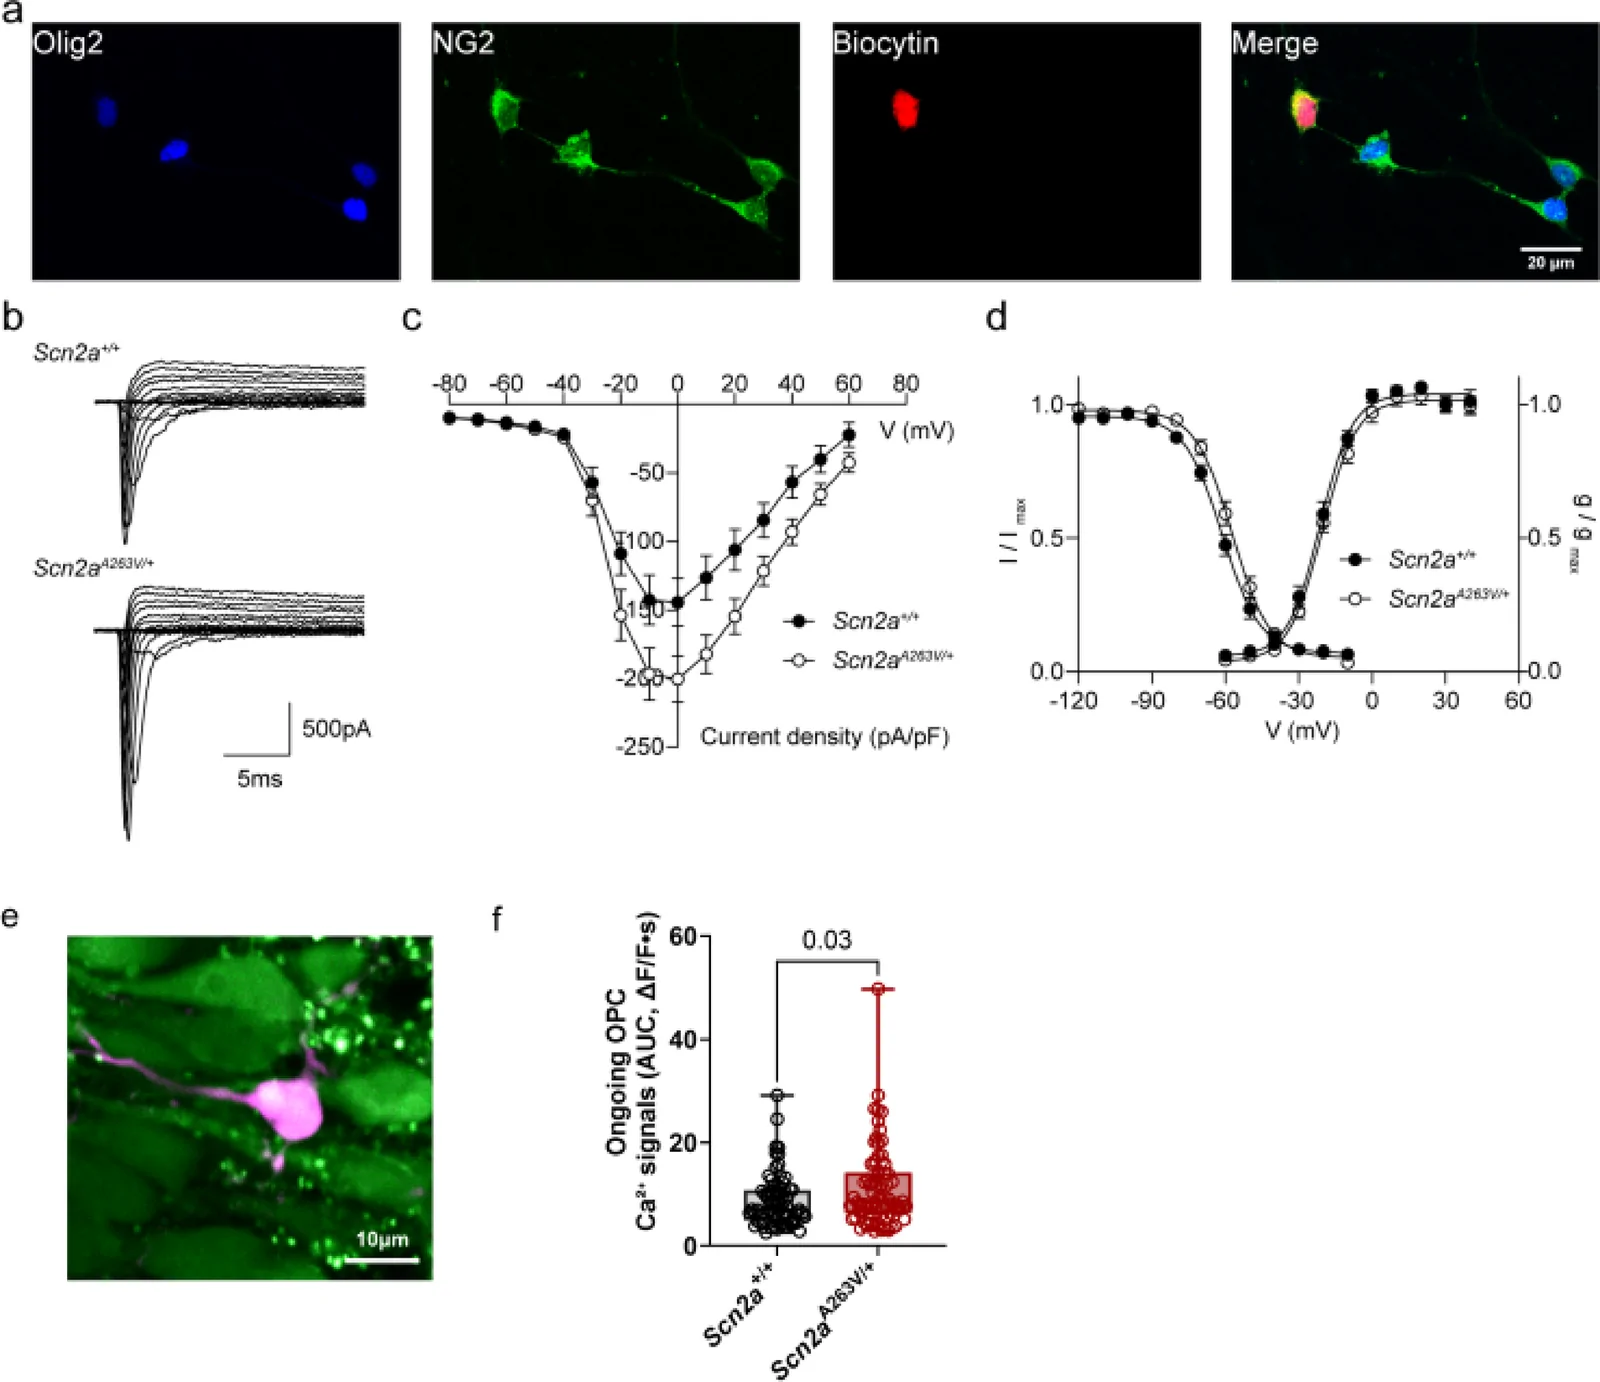 Fig. 4 与对照相比,Scn2ap.A263V/+突变OPC中钠电流升高且OPC钙瞬变增加。a 接受电生理记录的OPC(生物素标记,红色),显示与Olig2(蓝色)和NG2(绿色)共定位。比例尺20 μm。b 从培养的对照或突变OPC记录的瞬时内向电流(钠电流)代表图。c OPC中峰值钠电流(Scn2a+/+ = 19,Scn2ap.A263V/+ = 21)经细胞电容标准化后与电压的关系图。误差线表示SEM。采用双尾Welch t检验(p = 0.04,t = 2.1,df = 37.95)。d OPC中记录的钠电流电压依赖性稳态激活与失活。线条表示拟合数据点的Boltzmann函数。采用双尾Welch t检验(p = 0.0045,t = 3.2,df = 19.92);误差线表示SEM。e P4急性脑切片中NG2DsRed标记的OPC(品红色)加载Cal-520(绿色)的代表性图像。比例尺,10 μm。f 野生型与Scn2ap.A263V/+突变小鼠300秒记录期间OPC钙信号AUC(ΔF/F·s)的定量。每个点代表一个OPC,分析了来自15只对照小鼠的73个OPC和来自16只Scn2ap.A263V/+突变小鼠的78个OPC。采用双尾Mann–Whitney检验(p = 0.03,秩和4948、6528)
核心发现二:单细胞转录组揭示出生后早期少突胶质细胞成熟轨迹改变
通过对出生后第 4 天(P4)和第 14 天(P14)小鼠脑组织进行 scRNA-seq,研究者比较了对照组与 Scn2ap.A263V/+ 突变组少突胶质细胞谱系的转录状态。UMAP 分析显示,少突胶质细胞谱系包含多个亚型;在突变小鼠中,出生后早期发育过程中少突胶质细胞成熟呈现阶段特异性改变。
进一步分析发现,这些转录变化与更低的细胞状态变异性以及稍快的传导速度相关。也就是说,突变型 OPCs 在分子成熟路径上偏离了正常轨迹,使得群体异质性下降,并伴随神经环路传导特性的轻度改变。图1展示了 P4 与 P14 少突胶质细胞谱系亚型的转录组比较及 VHC(腹侧海马连合)传导速度结果。
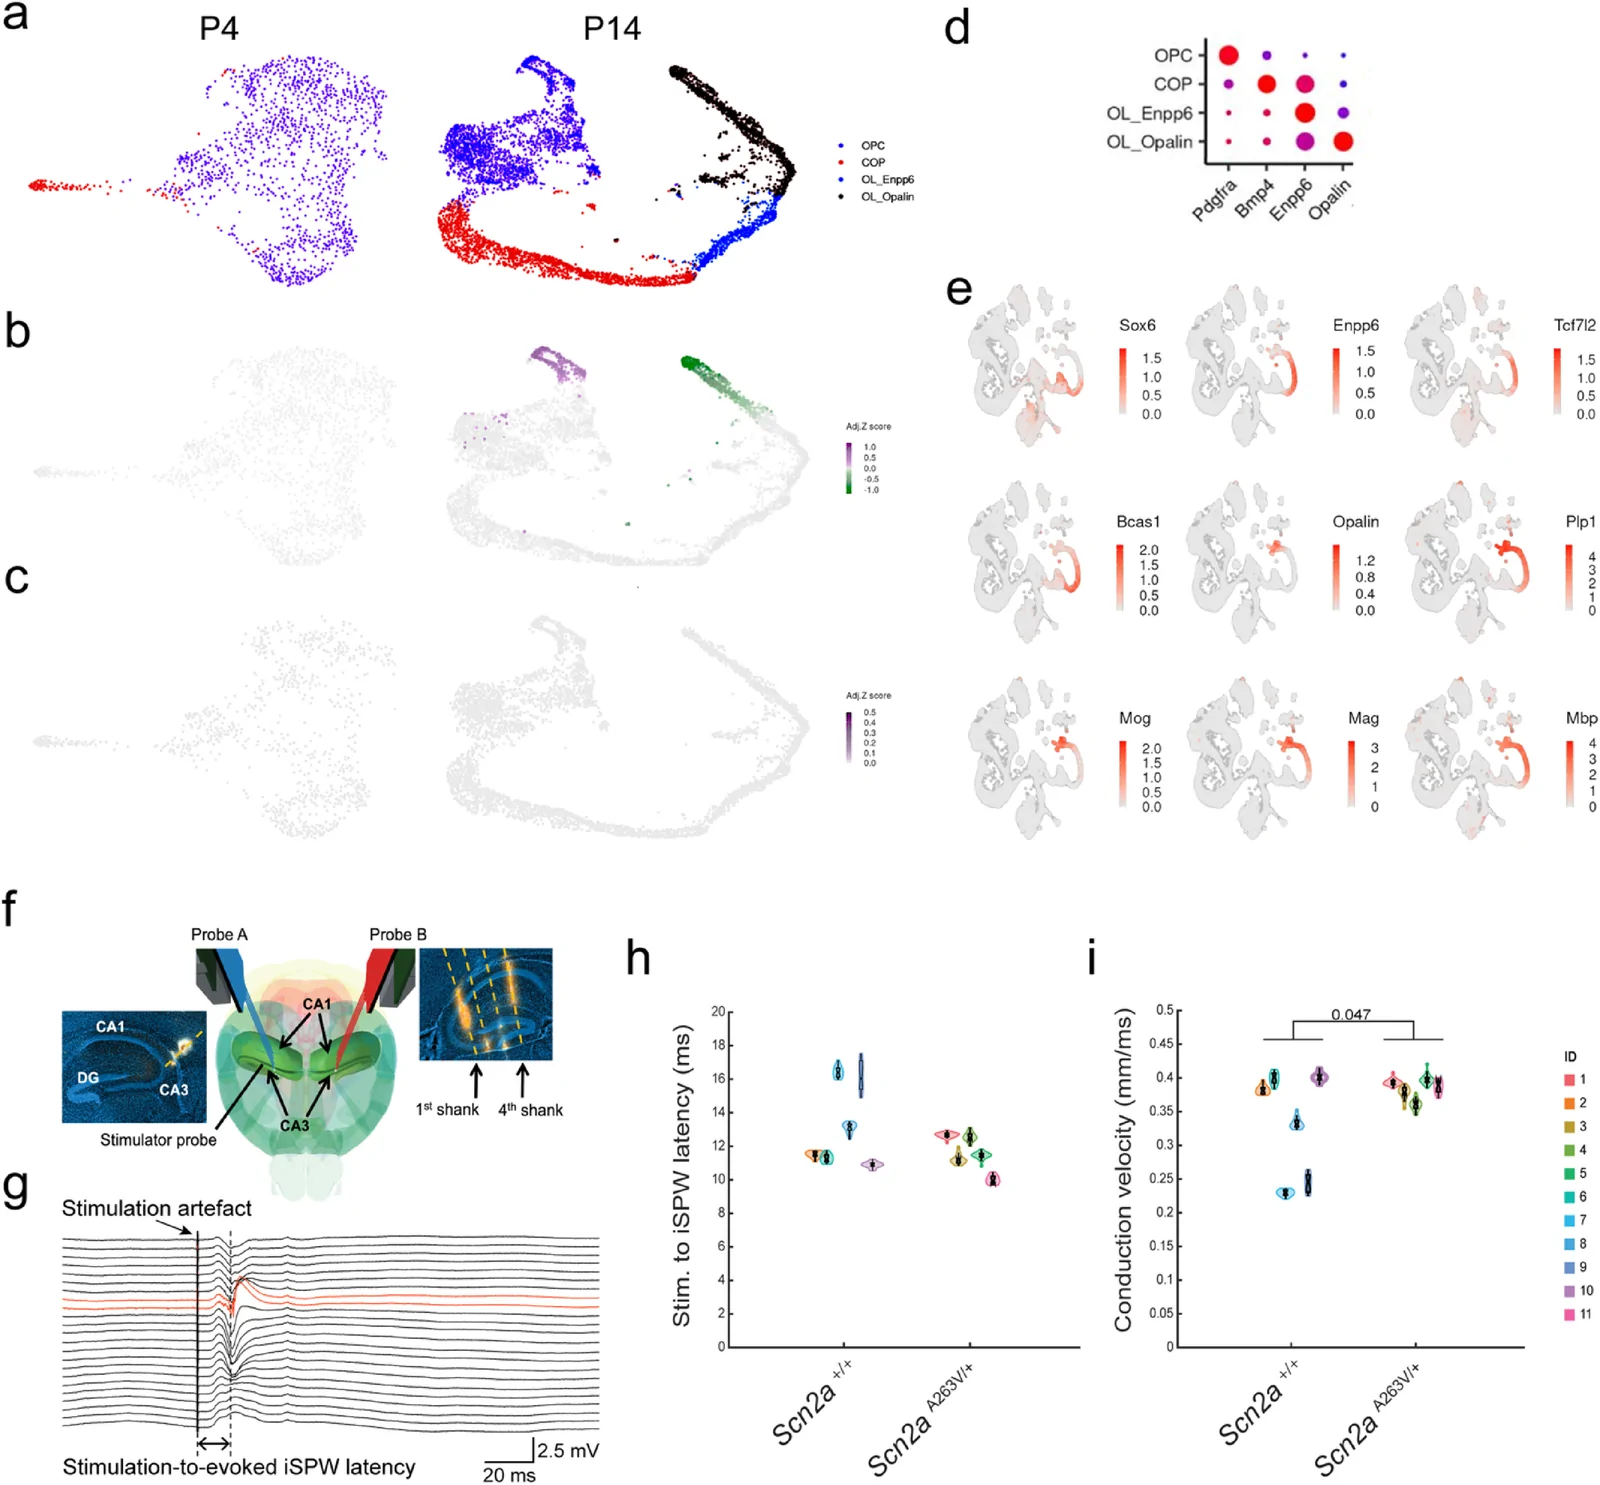 Fig. 1 少突胶质细胞谱系亚型中的转录组学比较及腹侧海马连合(VHC)传导速度。a P4和P14时少突胶质细胞谱系细胞的UMAP图,按细胞亚型注释着色。b P4和P14时少突胶质细胞谱系细胞的UMAP图,显示Scn2ap.A263V/+突变细胞在对照组与Scn2ap.A263V/+突变小鼠少突胶质细胞谱系细胞联合图上细胞密度的差异所反映的细胞组成变化,按校正后显著性水平着色。c P4和P14时少突胶质细胞谱系细胞的UMAP图,显示Scn2ap.A263V/+突变细胞在对照组与Scn2ap.A263V/+突变小鼠少突胶质细胞谱系细胞联合图上基因表达变化的程度,按校正后显著性水平着色。d 所选标志基因在少突胶质细胞谱系中的平均表达量及表达细胞比例。e 所有分析细胞的UMAP图,按新形成少突胶质细胞及成髓鞘/成熟少突胶质细胞所选标志基因的表达着色;嵌入图由P4和P14合并数据集生成。f 使用置于CA3b的双极刺激电极及沿CA1->齿状回轴矢状方向放置的双侧Neuropixels记录电极测量VHC传导速度的实验装置。DAPI染色组织切片显示刺激电极(左)和四柄Neuropixels 2.0电极(右)的DiI标记轨迹。g 背侧CA1诱发iSPW的代表性示例(红色轨迹表示CA1锥体层)。潜伏期根据刺激伪迹与iSPW波谷之间的时间计算。h 20个诱发对侧iSPW的原始潜伏期。对绝对中位偏差进行Wilcoxon秩和检验,MATLAB;W = 49.0,p = 0.017;n = 5只突变体,n = 6只对照。i VHC传导速度。线性混合效应模型,基因型固定效应;β = −0.0249,SE = 0.0124,t(217) = −2.00,p = 0.047,95% CI [−0.049, −0.0004];n = 5只突变体,n = 6只对照
核心发现三:成年突变小鼠灰质髓鞘增加,但少突胶质细胞数量与髓鞘结构未变
研究者进一步在组织层面评估髓鞘形成。对 P15 和 P60 小鼠脑切片进行 MBP(髓鞘碱性蛋白)与 APC(成熟少突胶质细胞标志物)免疫标记,并用 Imaris 软件进行三维重建,定量髓鞘节段(internode)的数量、长度和平均直径。
在白质(如胼胝体)中,P10、P20、P50 的 OPCs(NG2 阳性)和成熟少突胶质细胞(APC/CC1 阳性)数量在突变组与对照组之间没有显著差异(图2)。然而,在成年(P60)突变小鼠的灰质——包括皮层 I/II 层和海马 CA1 区——中,髓鞘形成增加:髓鞘节段数量上升,但少突胶质细胞总数和髓鞘基本结构(如节段长度、直径分布)并未发生相应改变。
图5汇总了对照组与突变组整体髓鞘变化及伪时间相关基因富集的 GO 生物过程;图6和图7分别给出 P15 与 P60 时海马和皮层中髓鞘节段数量的定量结果。值得注意的是,由于成熟少突胶质细胞中不存在 NaV1.2,研究者认为这种增强的髓鞘化并非少突胶质细胞本身的“原发性髓鞘病”,而更可能是神经元网络活动改变所引发的活动依赖性适应。
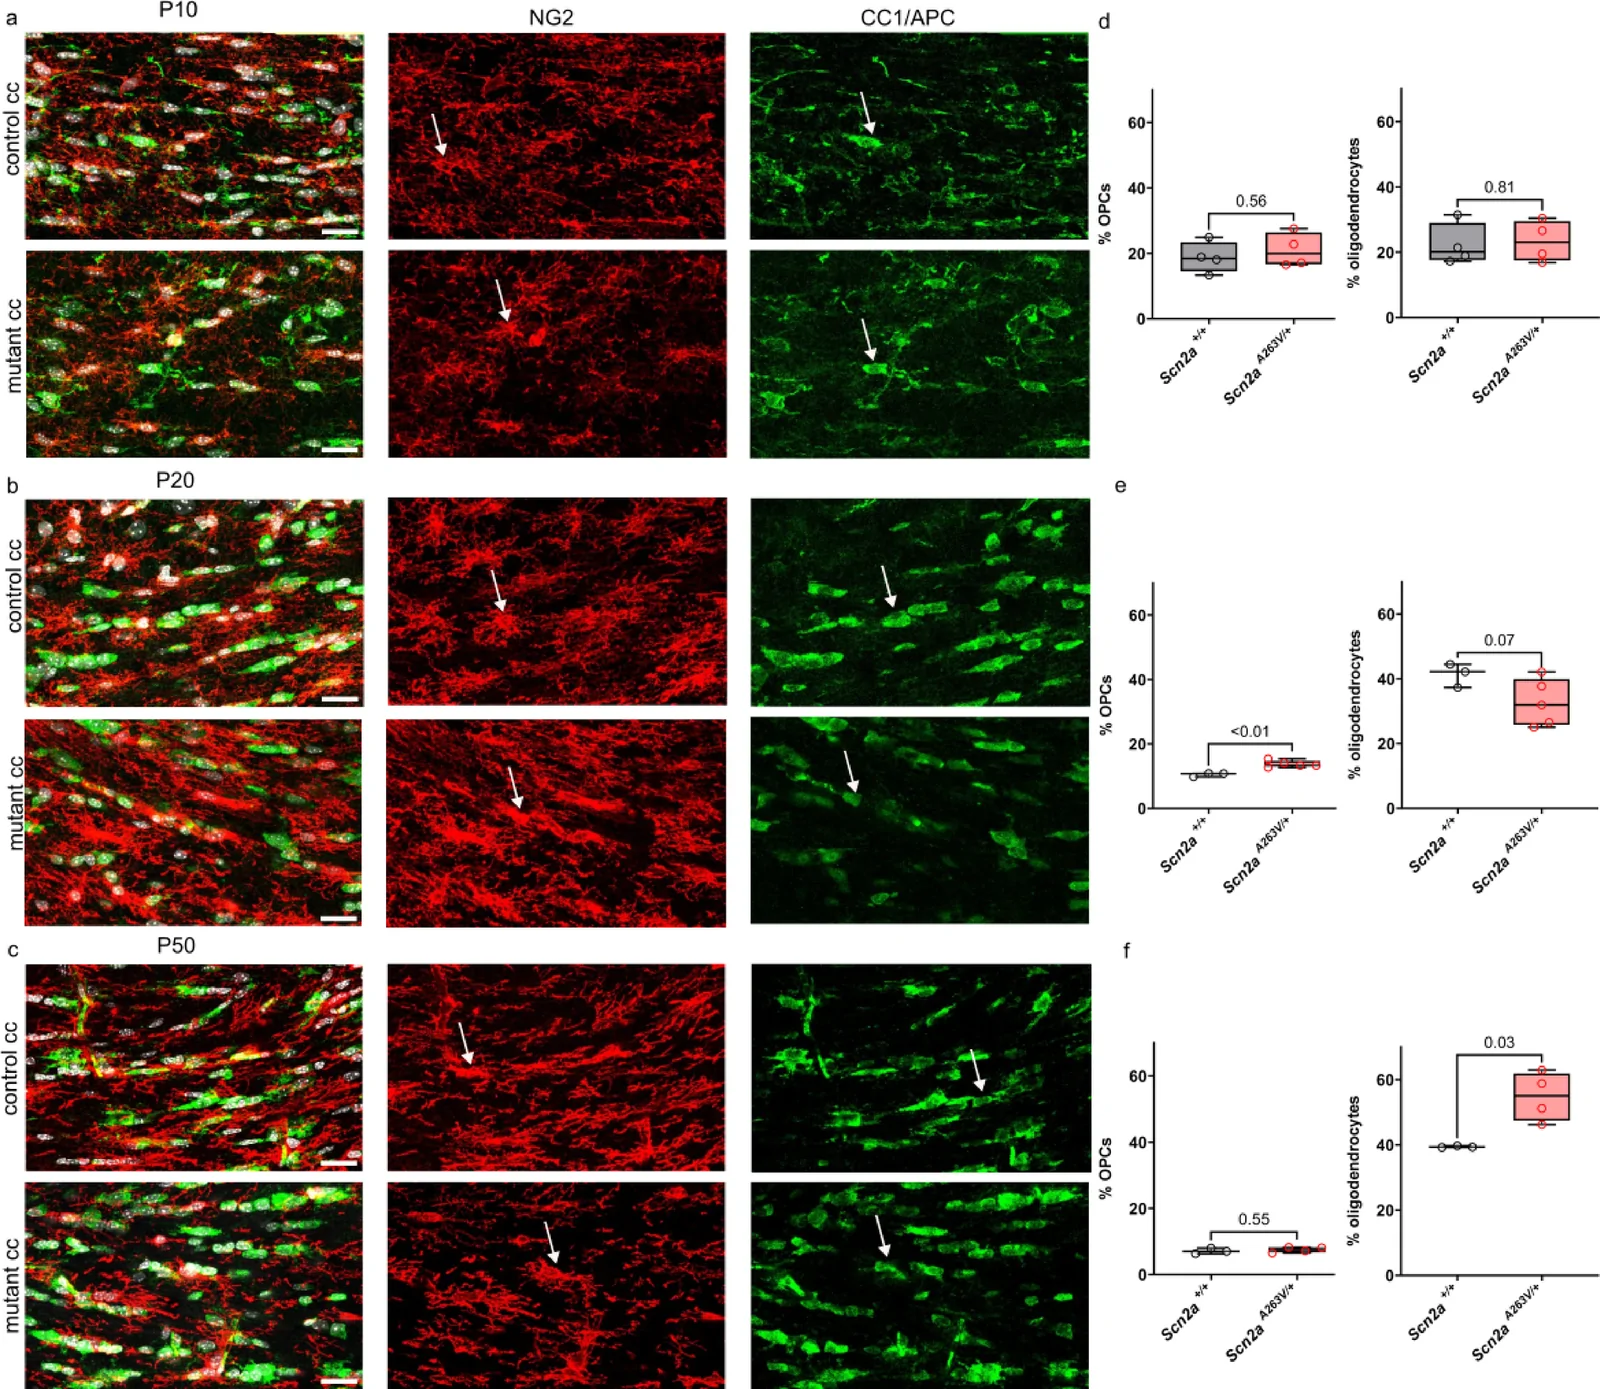 Fig. 2 不同年龄组对照与Scn2ap.A263V/+突变小鼠白质中少突胶质细胞数量 a P10时对照与突变小鼠胼胝体中OPC(抗NG2抗体标记,红色)和成熟少突胶质细胞(抗CC1抗体标记,绿色)。b P20时对照与突变小鼠胼胝体中OPC(抗NG2抗体标记,红色)和成熟少突胶质细胞(抗CC1抗体标记,绿色)。c P50时对照与突变小鼠胼胝体中OPC(抗NG2抗体标记,红色)和成熟少突胶质细胞(抗CC1抗体标记,绿色)。d P10时胼胝体所有细胞中OPC(左)和少突胶质细胞(右)百分比的评估。两种基因型中约20%的所有细胞为OPC。P10时两种基因型胼胝体中成熟少突胶质细胞约占总细胞的22%。每组N=4。两组间差异采用Welch t检验分析:OPC(p=0.56,t=0.62,df=5.95),少突胶质细胞(p=0.81,t=0.24,df=6)。e P20时胼胝体所有细胞中OPC(左)和少突胶质细胞(右)百分比的评估。对照小鼠中约10%的所有细胞为OPC,Scn2ap.A263V/+突变小鼠中显著增加至14%。P20时两种基因型胼胝体中成熟少突胶质细胞约占总细胞的40%。对照小鼠N=3,Scn2ap.A263V/+突变小鼠n=5。两组间差异采用双尾Welch检验分析:OPC(p<0.01,t=5.65,df=5.99),少突胶质细胞(p=0.07,t=2.24,df=5.96)。f P50时胼胝体所有细胞中OPC(左)和少突胶质细胞(右)百分比的评估。两种基因型中约7–8%的所有细胞为OPC。P50时对照小鼠胼胝体中成熟少突胶质细胞约占总细胞的40%,Scn2ap.A263V/+突变小鼠中显著增加至约55%。对照小鼠N=3,Scn2ap.A263V/+突变小鼠n=4。两组间差异采用Welch t检验分析:OPC(p=0.55,t=0.64,df=4.26),少突胶质细胞(p=0.03,t=4.10,df=3.01)
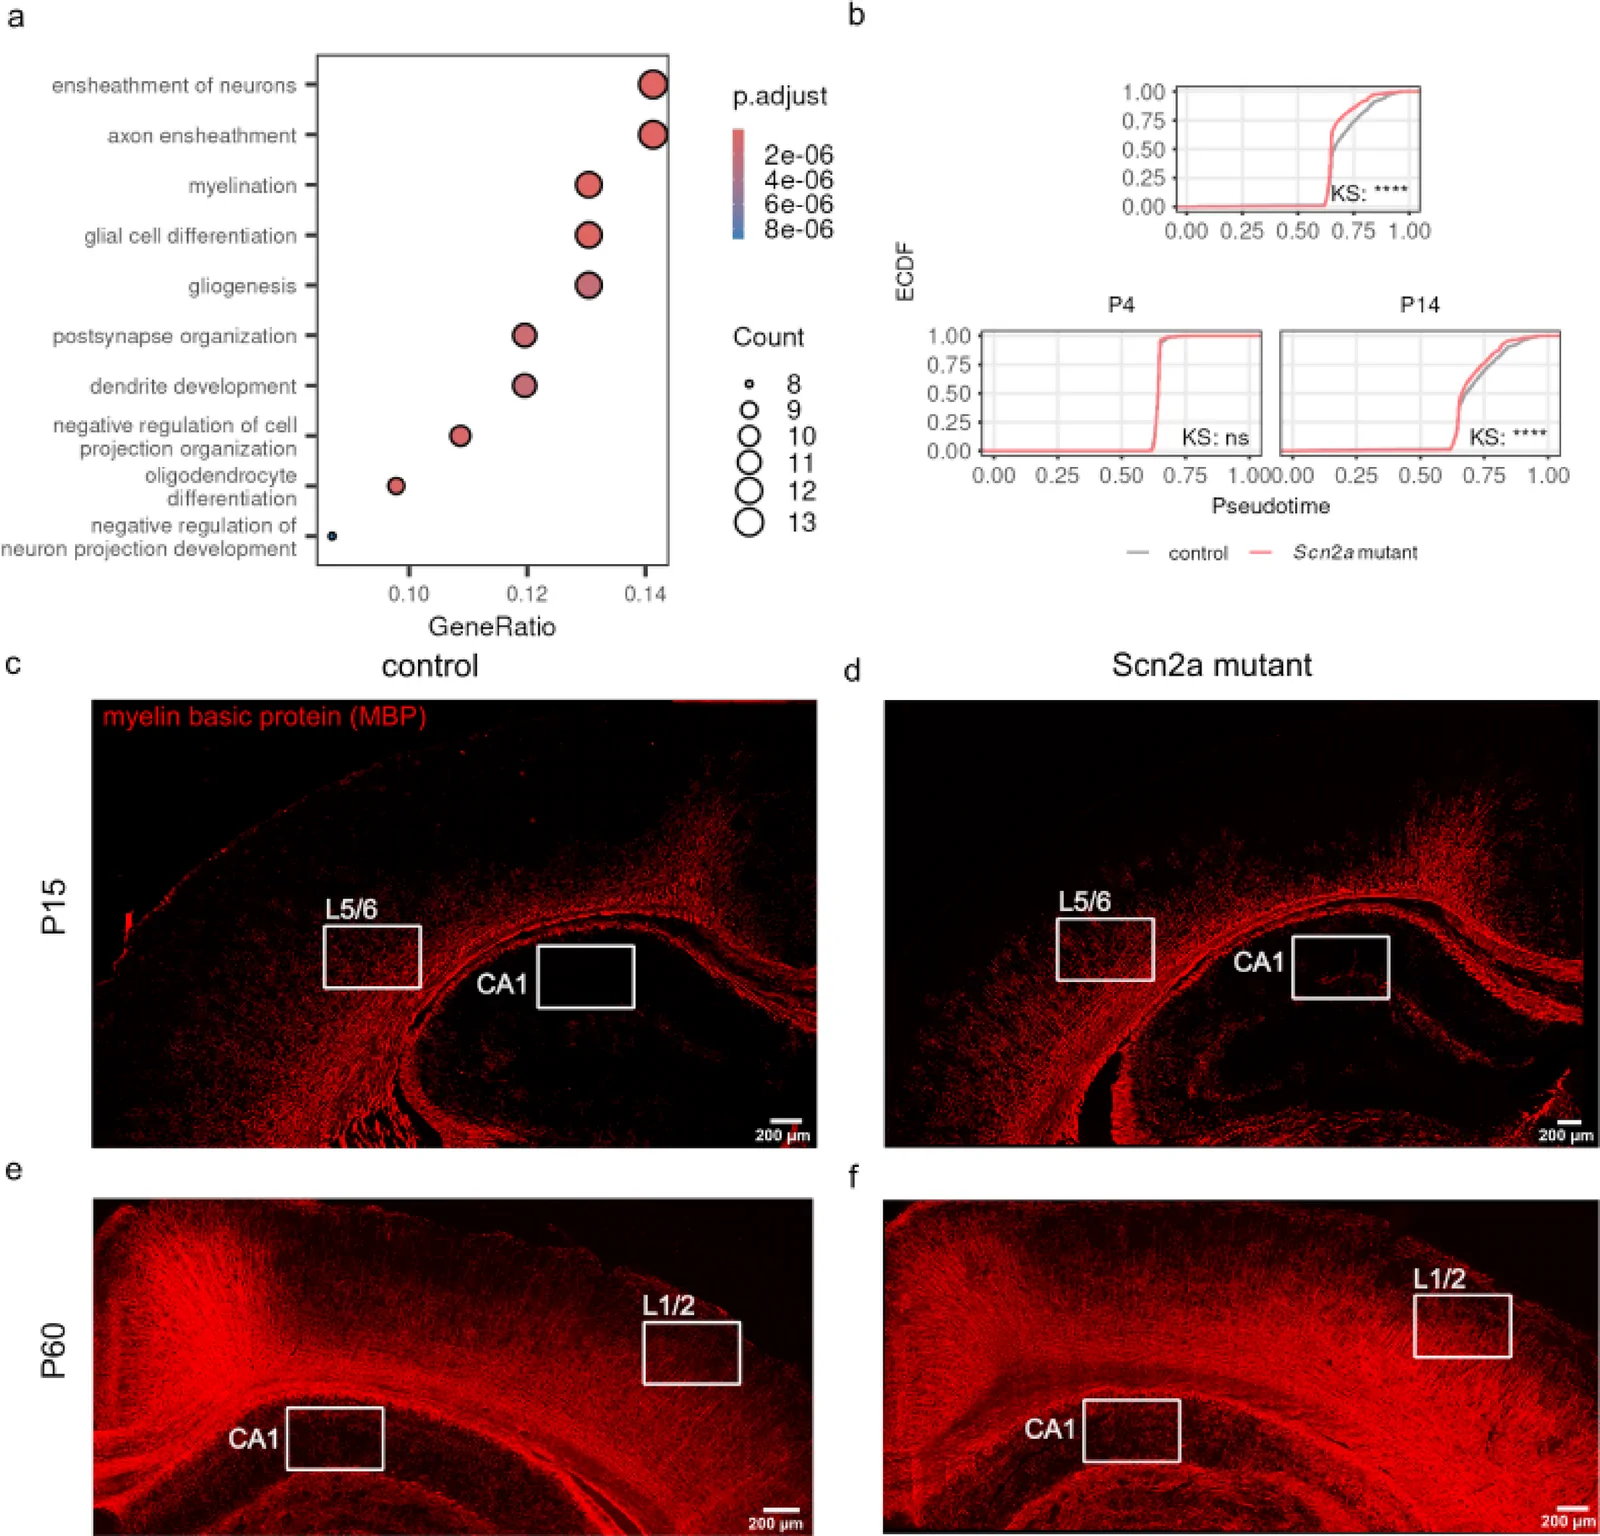 Fig. 5 Scn2a+/+对照与Scn2ap.A263V/+突变小鼠髓鞘形成的总体变化。a 少突胶质细胞谱系细胞中前100个假时间相关似然排序基因富集的前10个GO BP条目。b 对照与Scn2ap.A263V/+突变小鼠(所有年龄合并)少突胶质细胞谱系细胞假时间的经验累积分布函数。基因型间分布差异显著性采用双侧Kolmogorov–Smirnov检验评估。P值表示如下:ns(P ≥ 0.05)、*(P < 0.05)、**(P < 0.01)、***(P < 0.001)、****(P < 0.0001)。按年龄分层的对照与Scn2ap.A263V/+突变小鼠少突胶质细胞谱系细胞假时间的经验累积分布函数。基因型间分布差异显著性采用双侧Kolmogorov–Smirnov检验评估。P值表示如下:ns(P ≥ 0.05)、*(P < 0.05)、**(P < 0.01)、***(P < 0.001)、****(P < 0.0001)。c P15时对照小鼠皮层和海马总体髓鞘形成(抗MBP抗体染色,红色)的拼接扫描图像。d P15时Scn2ap.A263V/+突变小鼠皮层和海马总体髓鞘形成(抗MBP抗体染色,红色)的拼接扫描图像。e P60时对照小鼠皮层和海马总体髓鞘形成(抗MBP抗体染色,红色)的拼接扫描图像。f P60时Scn2ap.A263V/+突变小鼠皮层和海马总体髓鞘形成(抗MBP抗体染色,红色)的拼接扫描图像
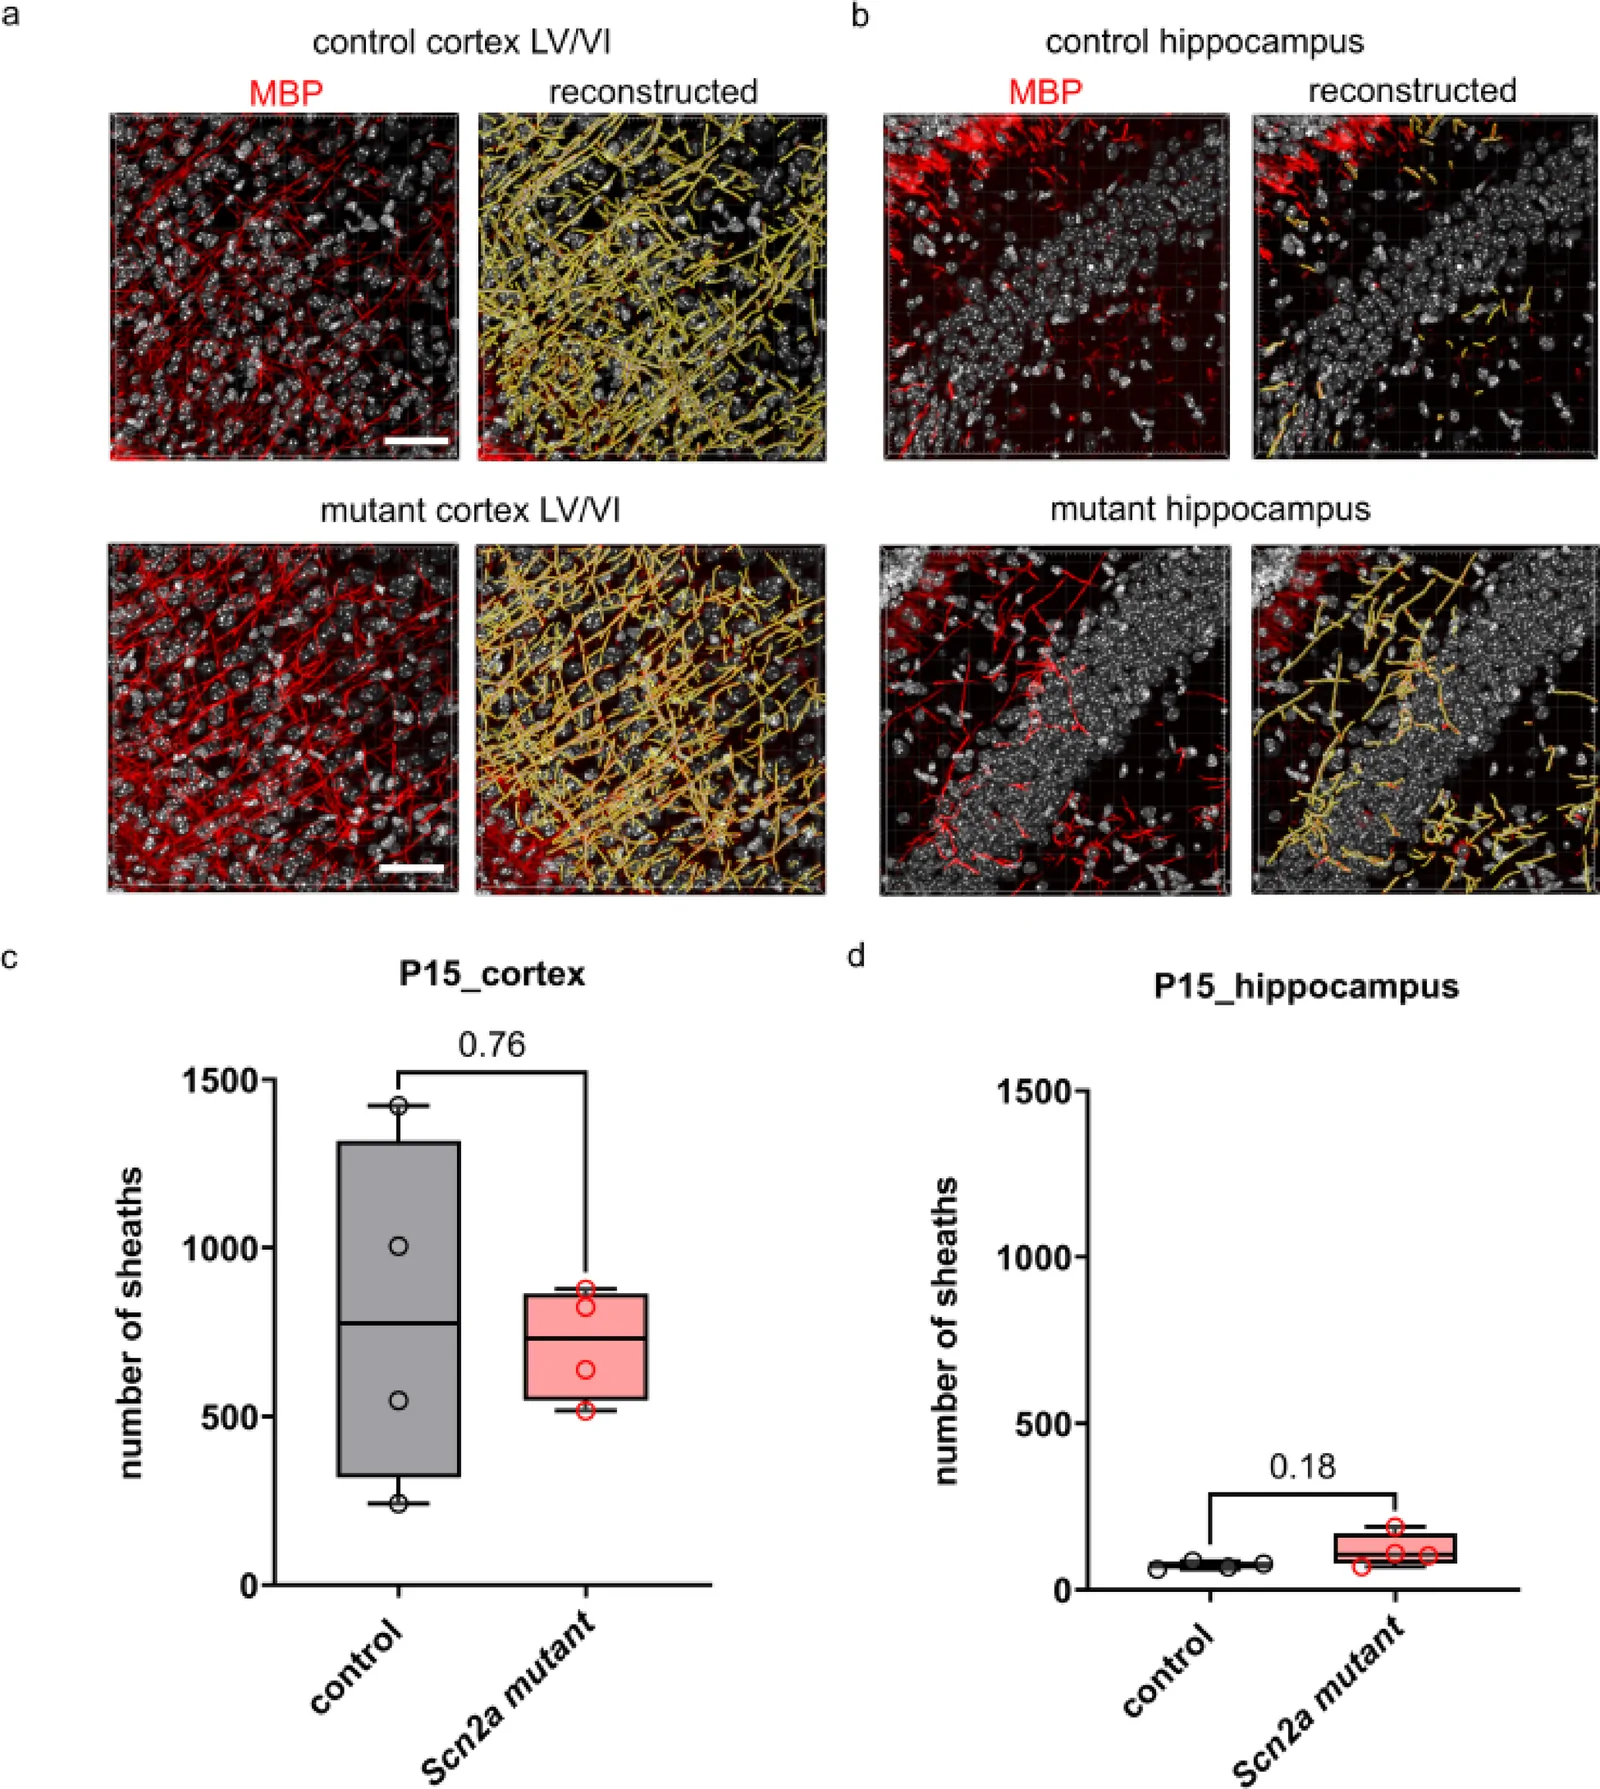 Fig. 6 P15时Scn2a+/+对照与Scn2ap.A263V/+突变小鼠海马和皮层中髓鞘数量。a P15时评估Scn2ap.A263V/+突变与Scn2a+/+对照小鼠皮层V/VI层的髓鞘数量。右侧面板为使用Imaris对髓鞘进行的3D重建。b P15时评估Scn2ap.A263V/+突变与对照小鼠海马CA1区的髓鞘数量。右侧面板为使用Imaris对髓鞘进行的3D重建。c P15时体感皮层V/VI层髓鞘数量的定量。每只小鼠分析3张图像并取平均值(对照和Scn2ap.A263V/+突变小鼠各n=4)。突变与对照间差异采用Welch t检验检测(p=0.76,t=0.33,df=3.62)。d P15时海马CA1区髓鞘数量的定量。每只小鼠分析3张图像并取平均值(对照和Scn2ap.A263V/+突变小鼠各n=4)。突变与对照间差异采用Welch t检验检测(P=0.18,t=1.71,df=3.28)。比例尺代表50 µm
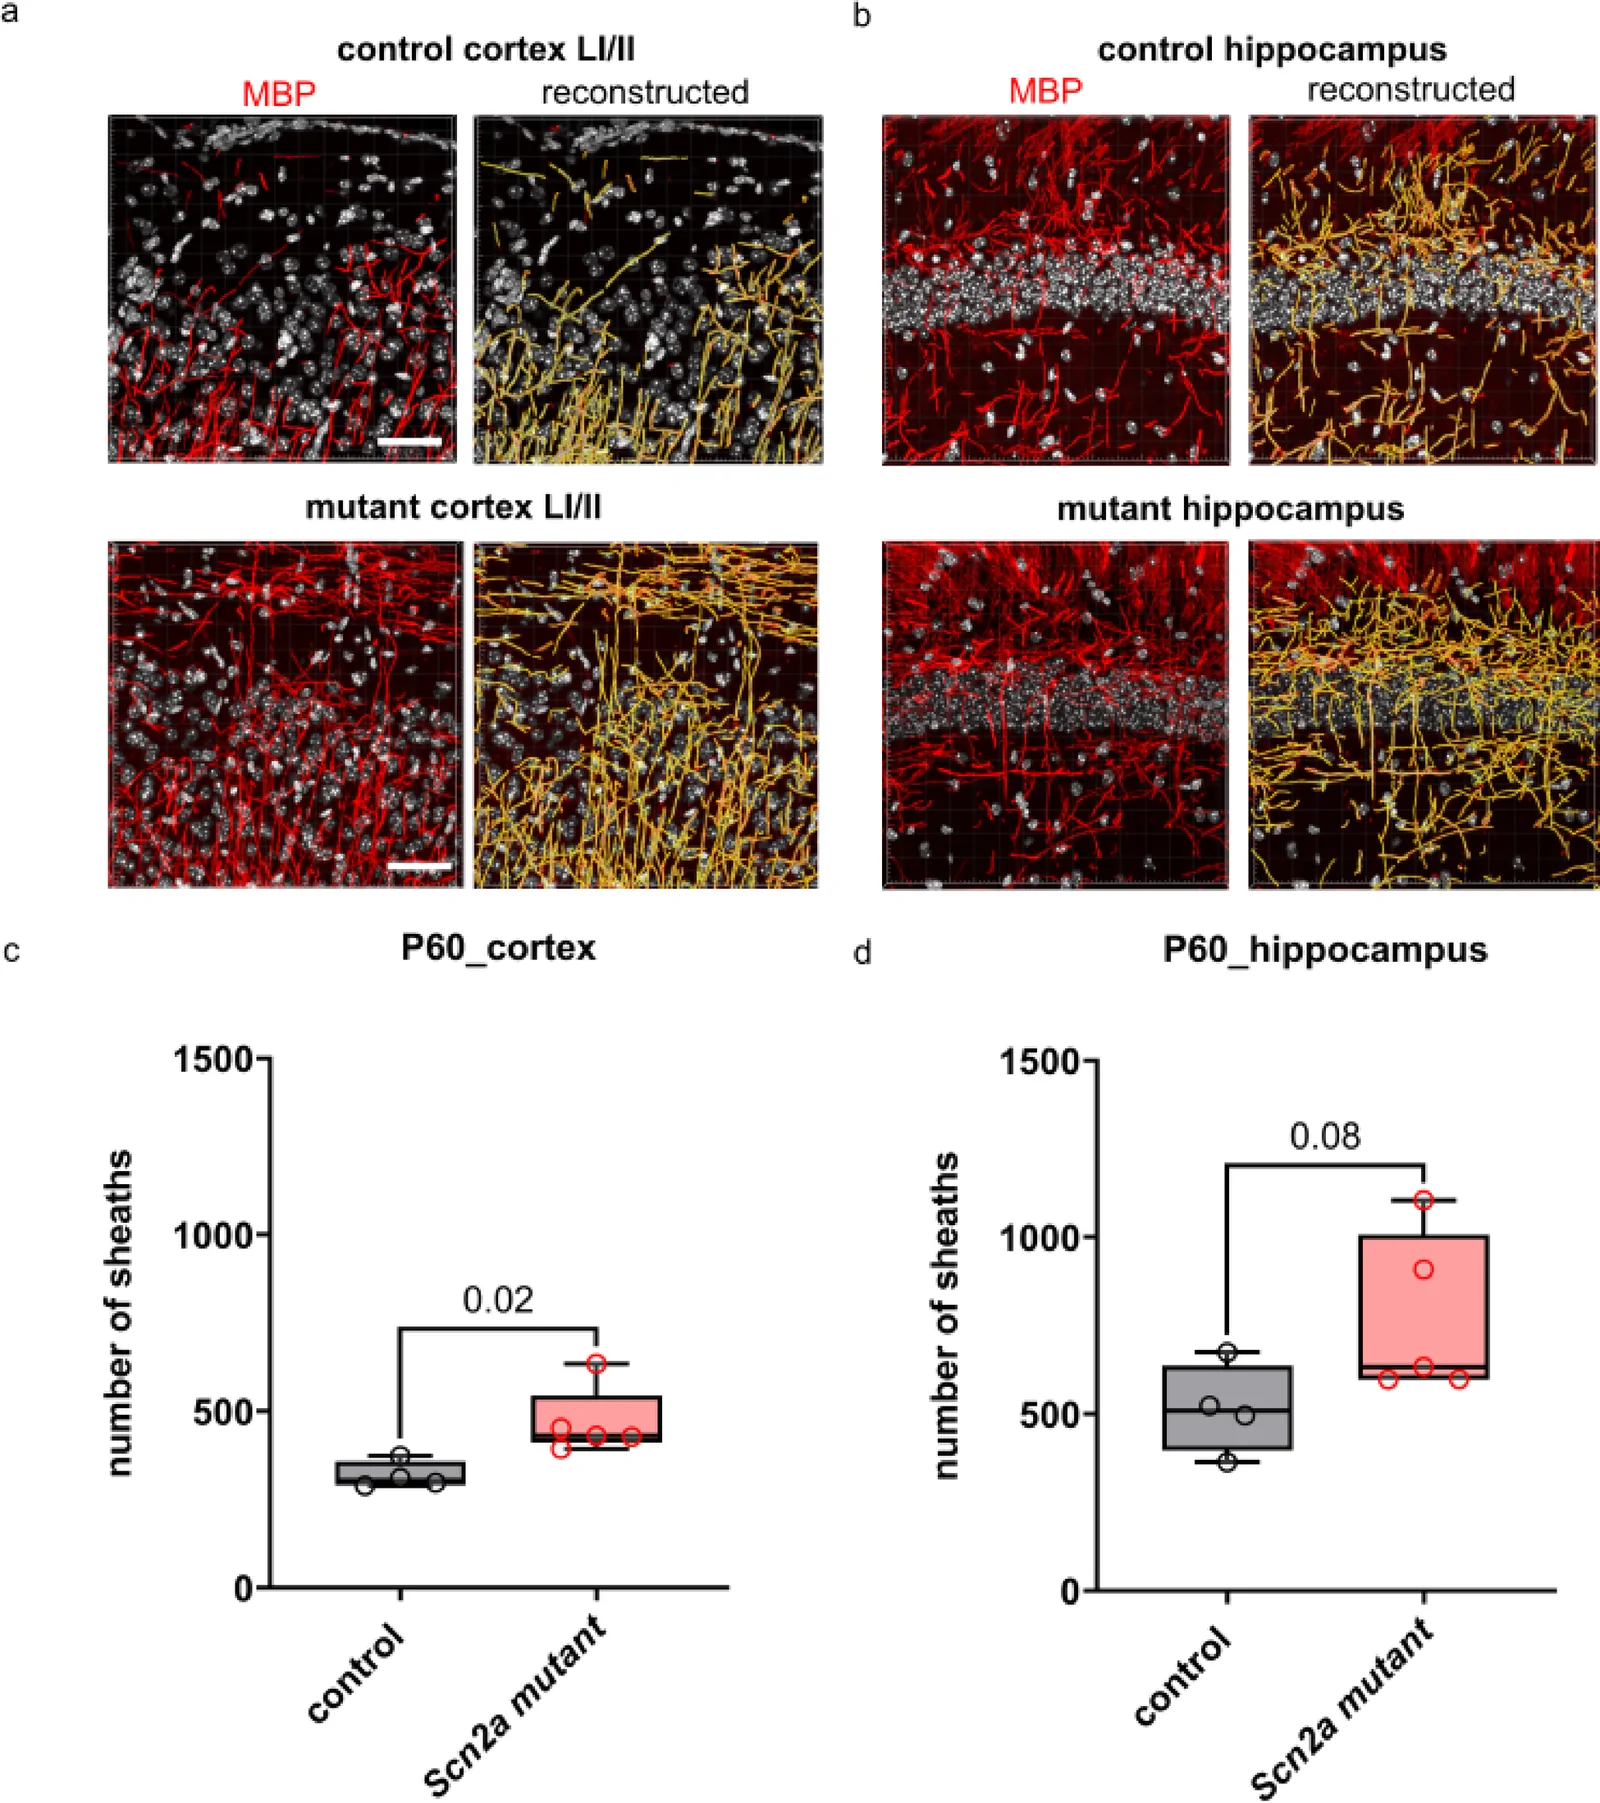 Fig. 7 P60时Scn2a+/+对照与Scn2ap.A263V/+突变小鼠海马和皮层中髓鞘数量。a P60时评估Scn2ap.A263V/+突变与对照小鼠皮层I/II层的髓鞘数量。右侧面板为使用Imaris对髓鞘进行的3D重建。b P60时评估Scn2ap.A263V/+突变与对照小鼠海马CA1区的髓鞘数量。右侧面板显示使用Imaris对髓鞘进行的3D重建。c P60时体感皮层I/II层髓鞘数量的定量。每只小鼠分析3张图像并取平均值(对照n=4,Scn2ap.A263V/+突变小鼠n=5)。突变与对照小鼠间差异采用Welch t检验检测(p=0.02,t=3.21,df=5.46)。d P60时海马CA1区髓鞘数量的定量。每只小鼠分析3张图像并取平均值(对照n=4,Scn2ap.A263V/+突变小鼠n=5)。突变与对照小鼠间差异采用Welch t检验检测(P=0.08,t=2.11,df=6.41)。比例尺代表50 µm
方法亮点:从单细朡到三维髓鞘重建的多层次技术组合
本研究在方法上有几个关键创新点。首先,团队结合 scRNA-seq 与免疫细胞化学,明确了 Scn2a/NaV1.2 在少突胶质细胞谱系中的发育阶段特异性分布:早期有、成熟无。其次,利用 膜片钳记录 直接测定原代培养 OPCs 的钠电流和膜特性,并通过 钙成像 捕捉突变 OPCs 的自发钙瞬变增强。
在髓鞘分析方面,研究者没有仅依赖二维切片计数,而是使用 Leica SP8 / Zeiss LSM 710 共聚焦显微镜 获取 50 层 z-stack 图像,再以 Imaris 10.0 的“filament tracing”工具 基于 MBP 信号三维重建髓鞘,设定参考直径 0.8–1.0 µm,并过滤短于 5 µm、直径小于 0.5 µm 的片段,从而精确量化髓鞘节段数目与形态。OPC 培养采用免疫panning(抗 A2B5、PDGFRα 阳性选择)从 P0–P4 小鼠皮层富集前体细胞,并与 E17.5 海马/皮层神经元共培养,以模拟体内神经元–胶质相互作用。
动物模型上,研究使用杂合 Scn2ap.A263V/+ 小鼠(基于 Schattling 等先前描述的品系),在 P15 与 P60 灌注取脑,覆盖发育期与成年期两个关键窗口,使“早期成熟改变”与“成年髓鞘增加”得以在时间轴上分开观察。
应用意义:把“胶质细胞”纳入 SCN2A 癫痫治疗视野
这项发表于 Acta Neuropathologica Communications(影响因子 6.5)的工作,首次系统说明:SCN2A 功能获得性变异不仅通过神经元超兴奋致病,也通过改变少突胶质细胞前体的电生理与成熟轨迹,间接重塑脑内髓鞘格局。
其临床与科研价值主要体现在三方面。第一,在机制层面,研究提示 SCN2A 相关 DEE 中观察到的白质异常,可能部分源于“神经元活动异常 → OPC 信号改变 → 成熟轨迹偏移 → 成年灰质髓鞘适应性增加”的级联反应,而非胶质细胞自主的髓鞘病变。第二,在治疗层面,作者强调开发靶向疗法时不能只盯着神经元,必须考虑 neuron–glia 交互;例如调节网络活动或 OPC 钙信号的策略,或可成为辅助干预方向。第三,在疾病修饰层面,由于成年突变鼠灰质髓鞘增加但结构正常,说明脑内存在一定代偿或适应空间,这为理解癫痫脑中“可塑性”与“病理”的边界提供了新线索。
当然,研究也留下开放问题:为何白质少突胶质细胞数量不变而灰质髓鞘增加?这种髓鞘增加对癫痫发作阈值和认知结局是保护性还是 maladaptive?未来需要在更大样本、更长时程及人类组织/ iPSC 模型中验证。但可以肯定的是,SCN2A 癫痫的“细胞剧本”里,少突胶质细胞已经从配角变成了不可忽视的关键角色。
本文图片转载自 PMC 开放获取全文,仅供学习参考,请以原文为准。