文章中心
了解、体验、感悟、分享——汇聚平台使用教程与科研动态。
减数分裂黏连蛋白现身干细胞:基因组架构新调控者
原文:Roles of meiotic and mitotic cohesin in stem cell gene regulation and genome stability.
期刊:Molecular therapy. Nucleic acids(影响因子 6.5) | PubMed | PMC 全文(含 PDF)
关键图表
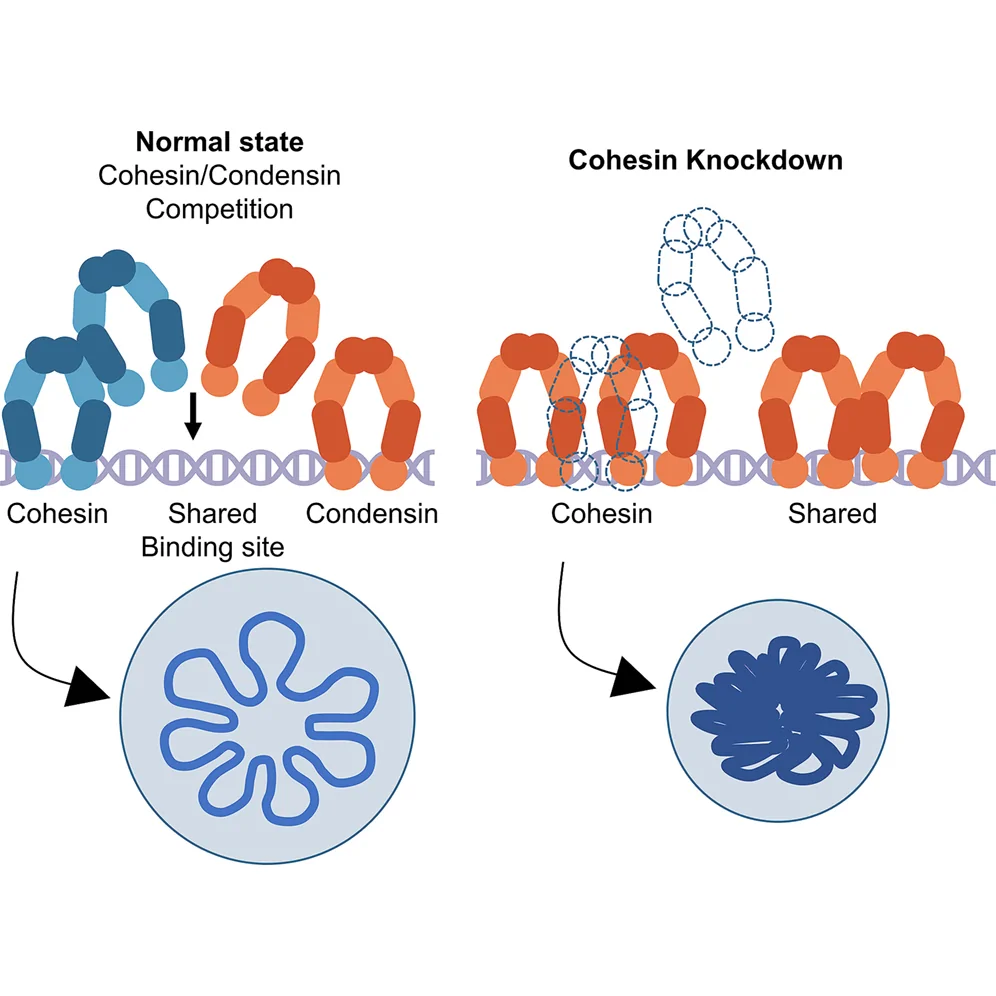
在真核生物中,染色体并不是一团乱麻,而是被一类称为“黏连蛋白”(cohesin)的环状蛋白复合物精心折叠、固定和修复。长久以来,生物学教科书把黏连蛋白分成两套系统:一套是几乎所有增殖细胞都在用的“有丝分裂型”黏连蛋白,负责把复制后的姐妹染色单体箍在一起、塑造三维基因组里的染色质环;另一套则被认为是“生殖细胞专属”的“减数分裂型”黏连蛋白,只在精子和卵子发生的减数分裂中登场。
然而,一篇发表在《Molecular Therapy – Nucleic Acids》(影响因子 6.5)上的综述论文,正在改写这条边界。论文题为《Roles of meiotic and mitotic cohesin in stem cell gene regulation and genome stability》,作者系统梳理了近年来的转录组、蛋白组和染色质图谱证据,指出:原本被认为只属于生殖细胞的减数分裂黏连蛋白亚基——尤其是 REC8 和 STAG3——竟然也表达于胚胎干细胞(ESCs)中,并且与核心亚基 SMC3 组装成非经典复合物,占据与常规 RAD21-黏连蛋白不同的基因组位置,参与调控多能性基因表达和维持基因组稳定性。
研究背景:从“生殖专属”到“干细胞也有”
经典的黏连蛋白是一个由 SMC 蛋白家族构成的环状分子机器。核心结构包括 SMC1A 与 SMC3 形成的异源二聚体、kleisin 亚基 RAD21,以及 STAG1 或 STAG2 等 HEAT 重复蛋白。这个环像“手铐”一样把 DNA 套住,既能在细胞分裂时防止姐妹染色单体提前分开,也能通过“环挤压”(loop extrusion)把基因组折叠成拓扑关联结构域(TADs)和增强子-启动子接触环,从而调控基因表达。
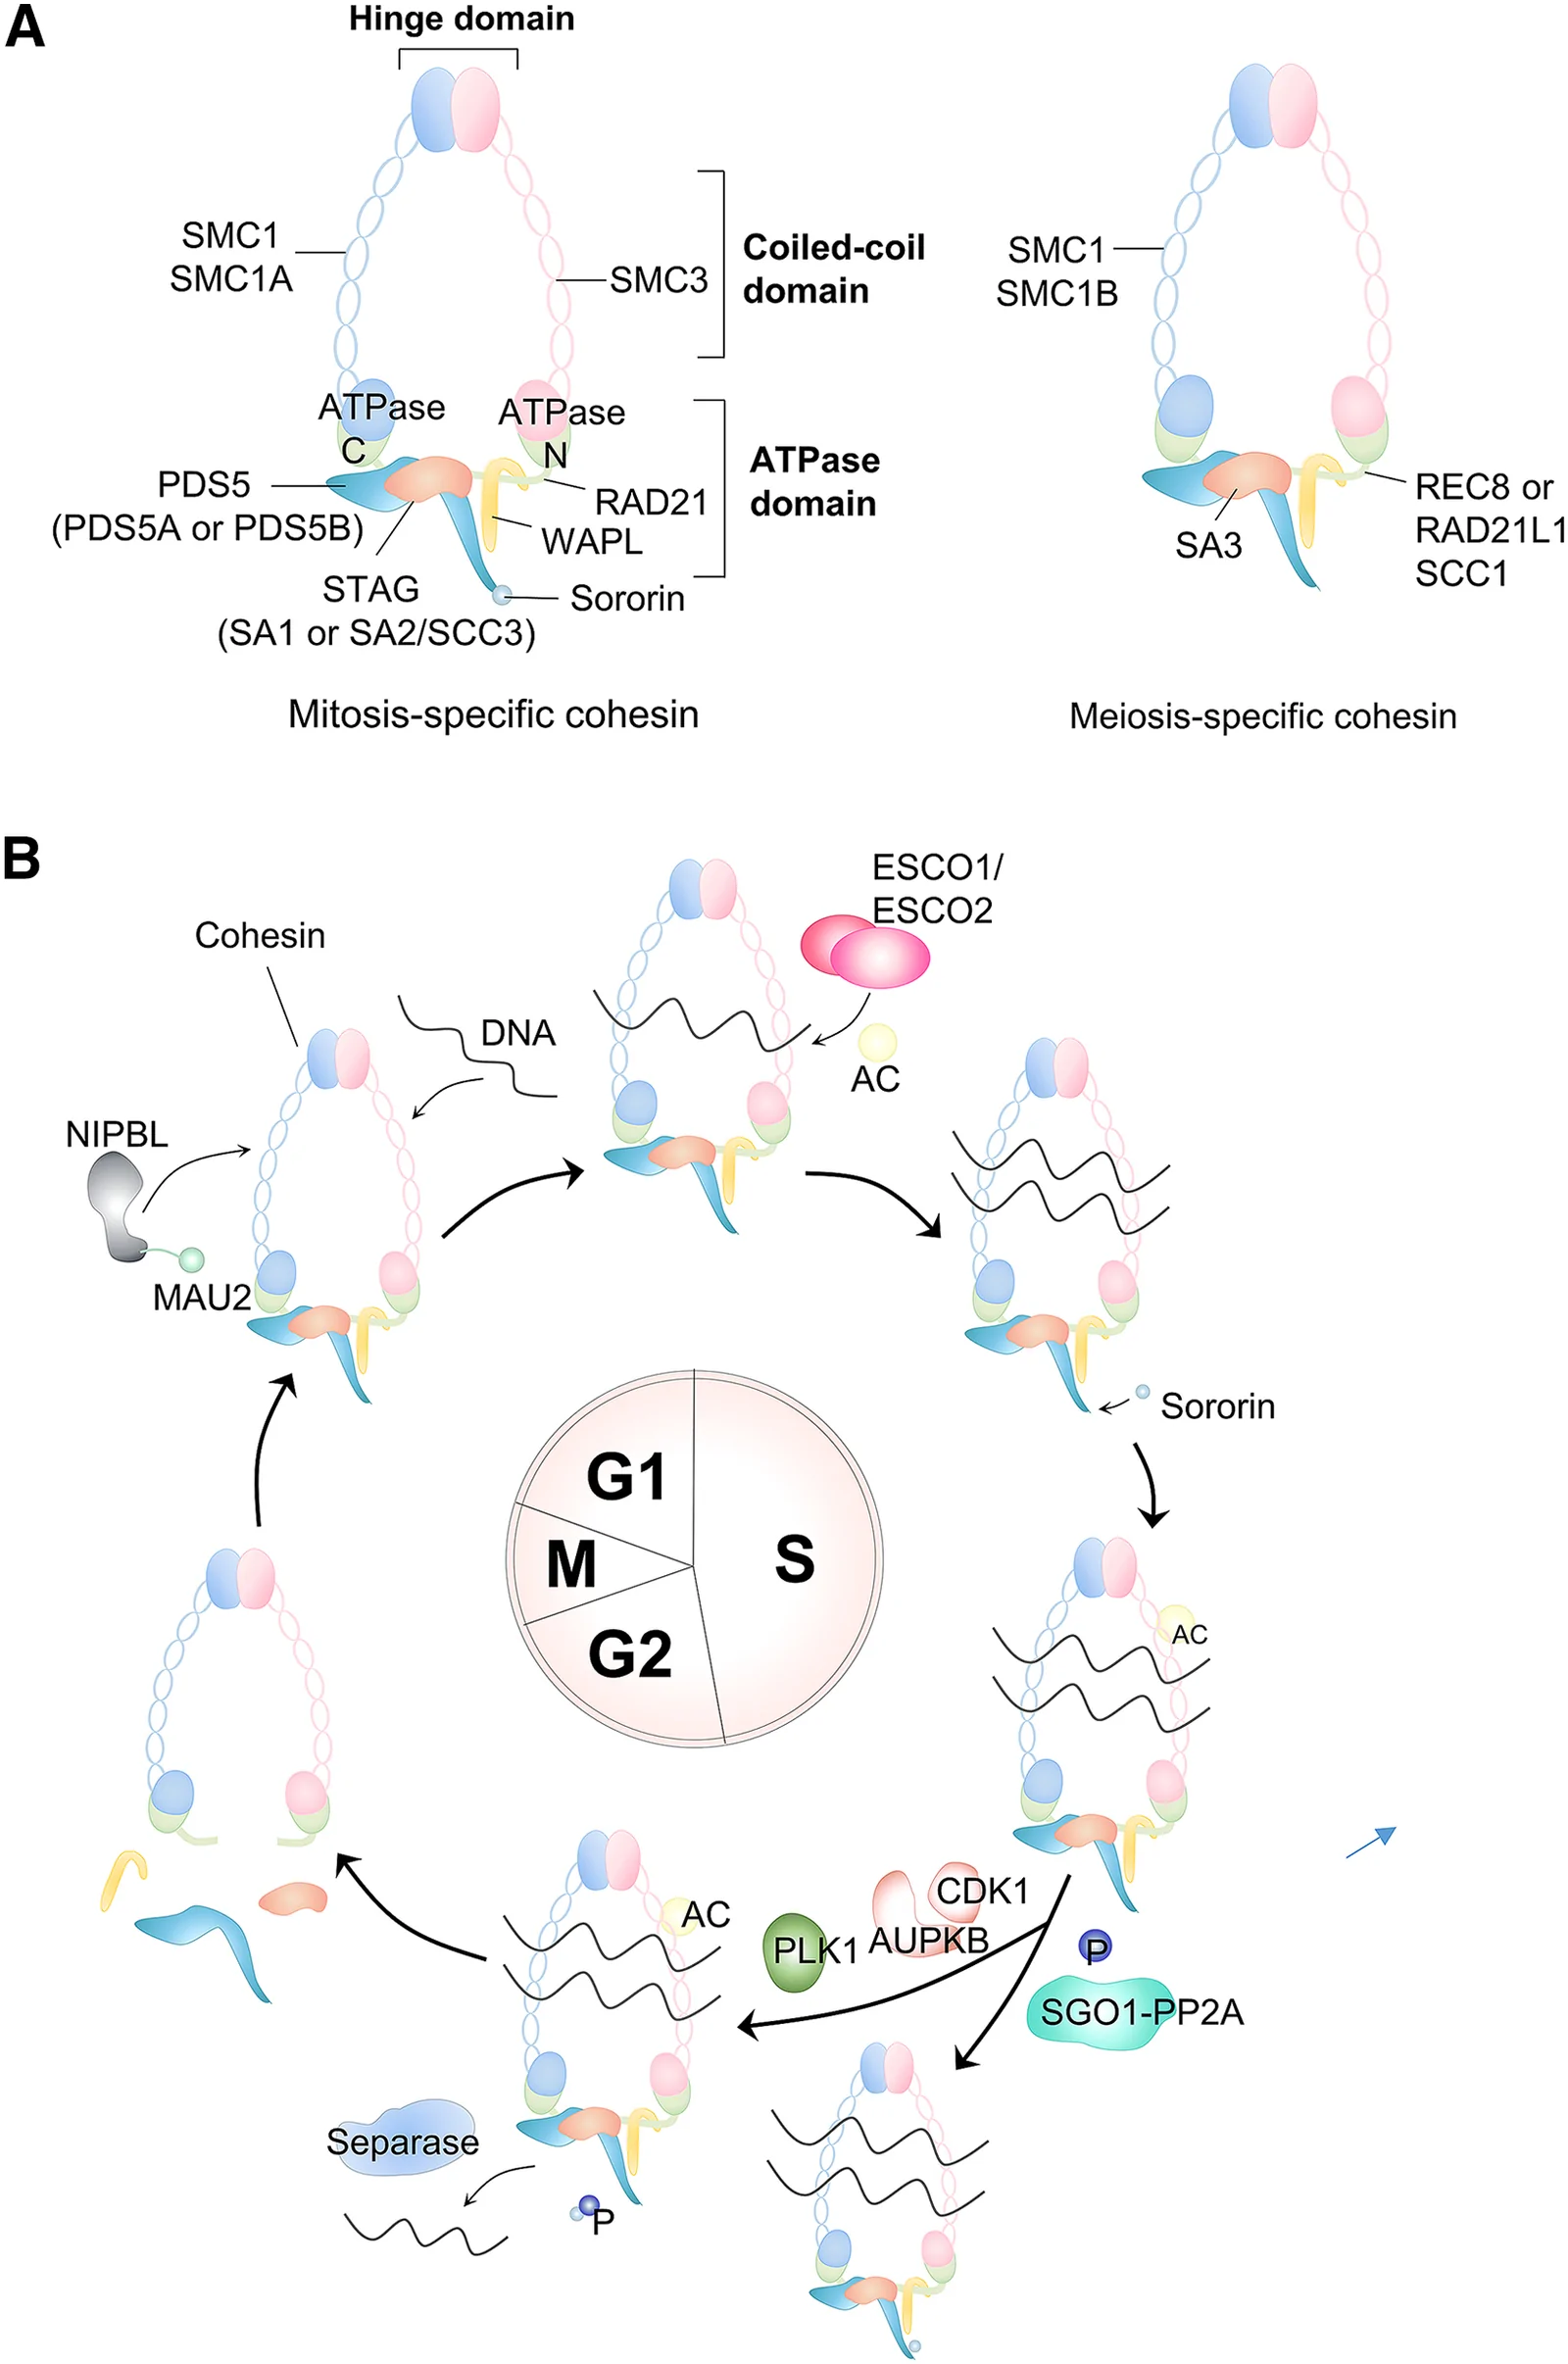
相比之下,减数分裂型黏连蛋白会替换掉其中的几个部件:用 SMC1B 替代 SMC1A,用 REC8 替代 RAD21,用 STAG3 替代 STAG1/2。过去认为,这些“替换件”只在生殖细胞减数分裂时表达,负责同源染色体联会、重组和逐步释放黏连。
但单细包转录组、靶向蛋白组学和免疫荧光实验逐渐发现,在小鼠和人类胚胎干细胞群体中,也能检测到 REC8 和 STAG3 的转录本与蛋白,且它们定位在染色质上。更关键的是,免疫共沉淀实验显示,REC8 和 STAG3 能与 SMC3 等核心亚基组装在一起,形成一种替代 RAD21 结构的复合物。这意味着,干细胞里可能存在一种“混合型”或“非经典”的黏连蛋白机器。
核心发现:减数分裂黏连蛋白在干细胞中做什么
这篇综述比较了有丝分裂型和减数分裂型黏连蛋白在亚基组成、表达模式、调控敏感性、停留时间和移除机制上的差异。作者指出,两种复合物虽然都是环状 SMC 装配体,都能套住 DNA 并挤压染色质环,但它们的“零件”不同,导致功能输出也不同。
在胚胎干细胞中,减数分裂型黏连蛋白并不是简单地重复 RAD21-黏连蛋白的工作。染色质定位图谱显示,REC8/STAG3 复合物的结合位点与经典 RAD21-黏连蛋白部分重叠,但也出现在独特的基因组区域——这些区域富集了发育调控基因和重复序列。换句话说,它们可能在多能性细胞核里承担专门任务。
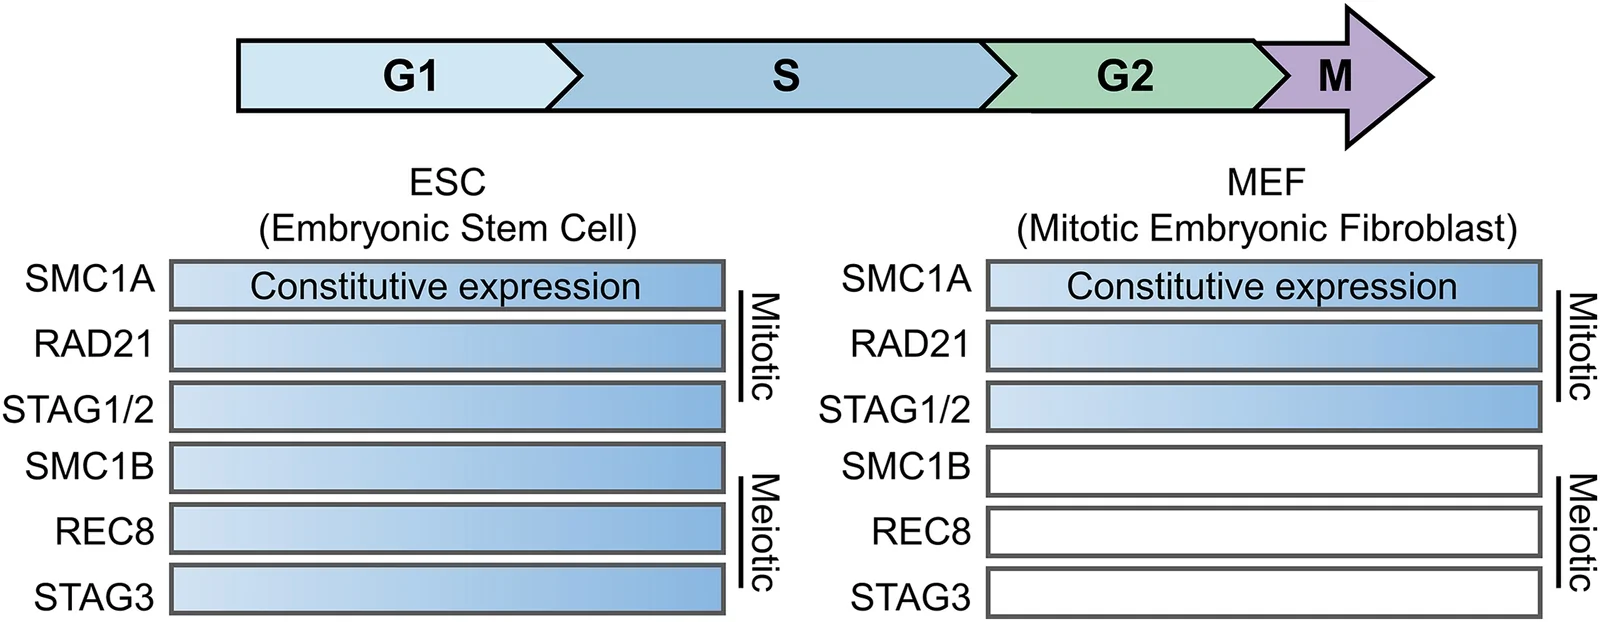
具体而言,这些任务可以归纳为两方面。第一,它们可能调节高阶染色质结构。REC8/STAG3 复合物通过改变环挤压动力学、边界形成或黏连蛋白在染色质上的停留时间,影响增强子与启动子之间的接触,从而维持多能性转录程序。第二,它们参与基因组稳定性维护。胚胎干细胞的细胞周期很短,复制压力大;当黏连蛋白被耗竭时,复制应激标志物和分裂缺陷会上升。REC8/STAG3 复合物被招募到停滞的复制叉附近,暗示它们可能保护复制叉或帮助其重启。
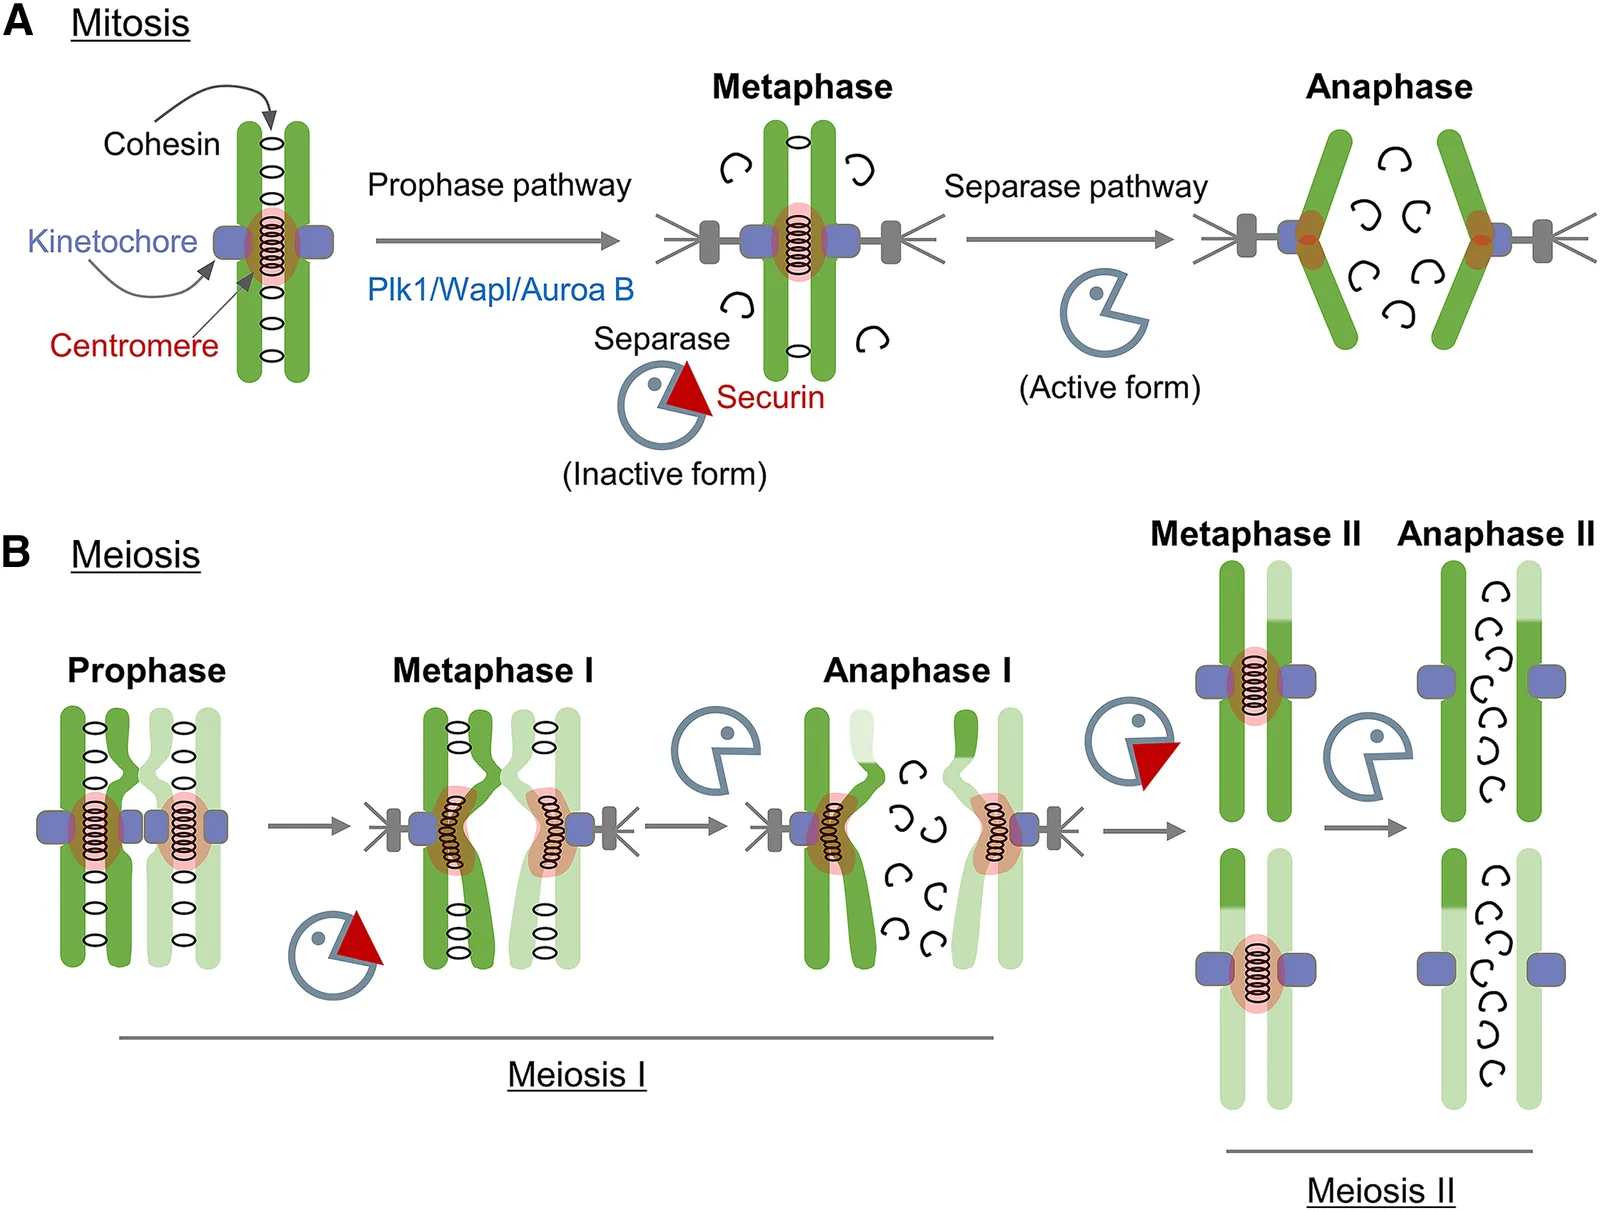
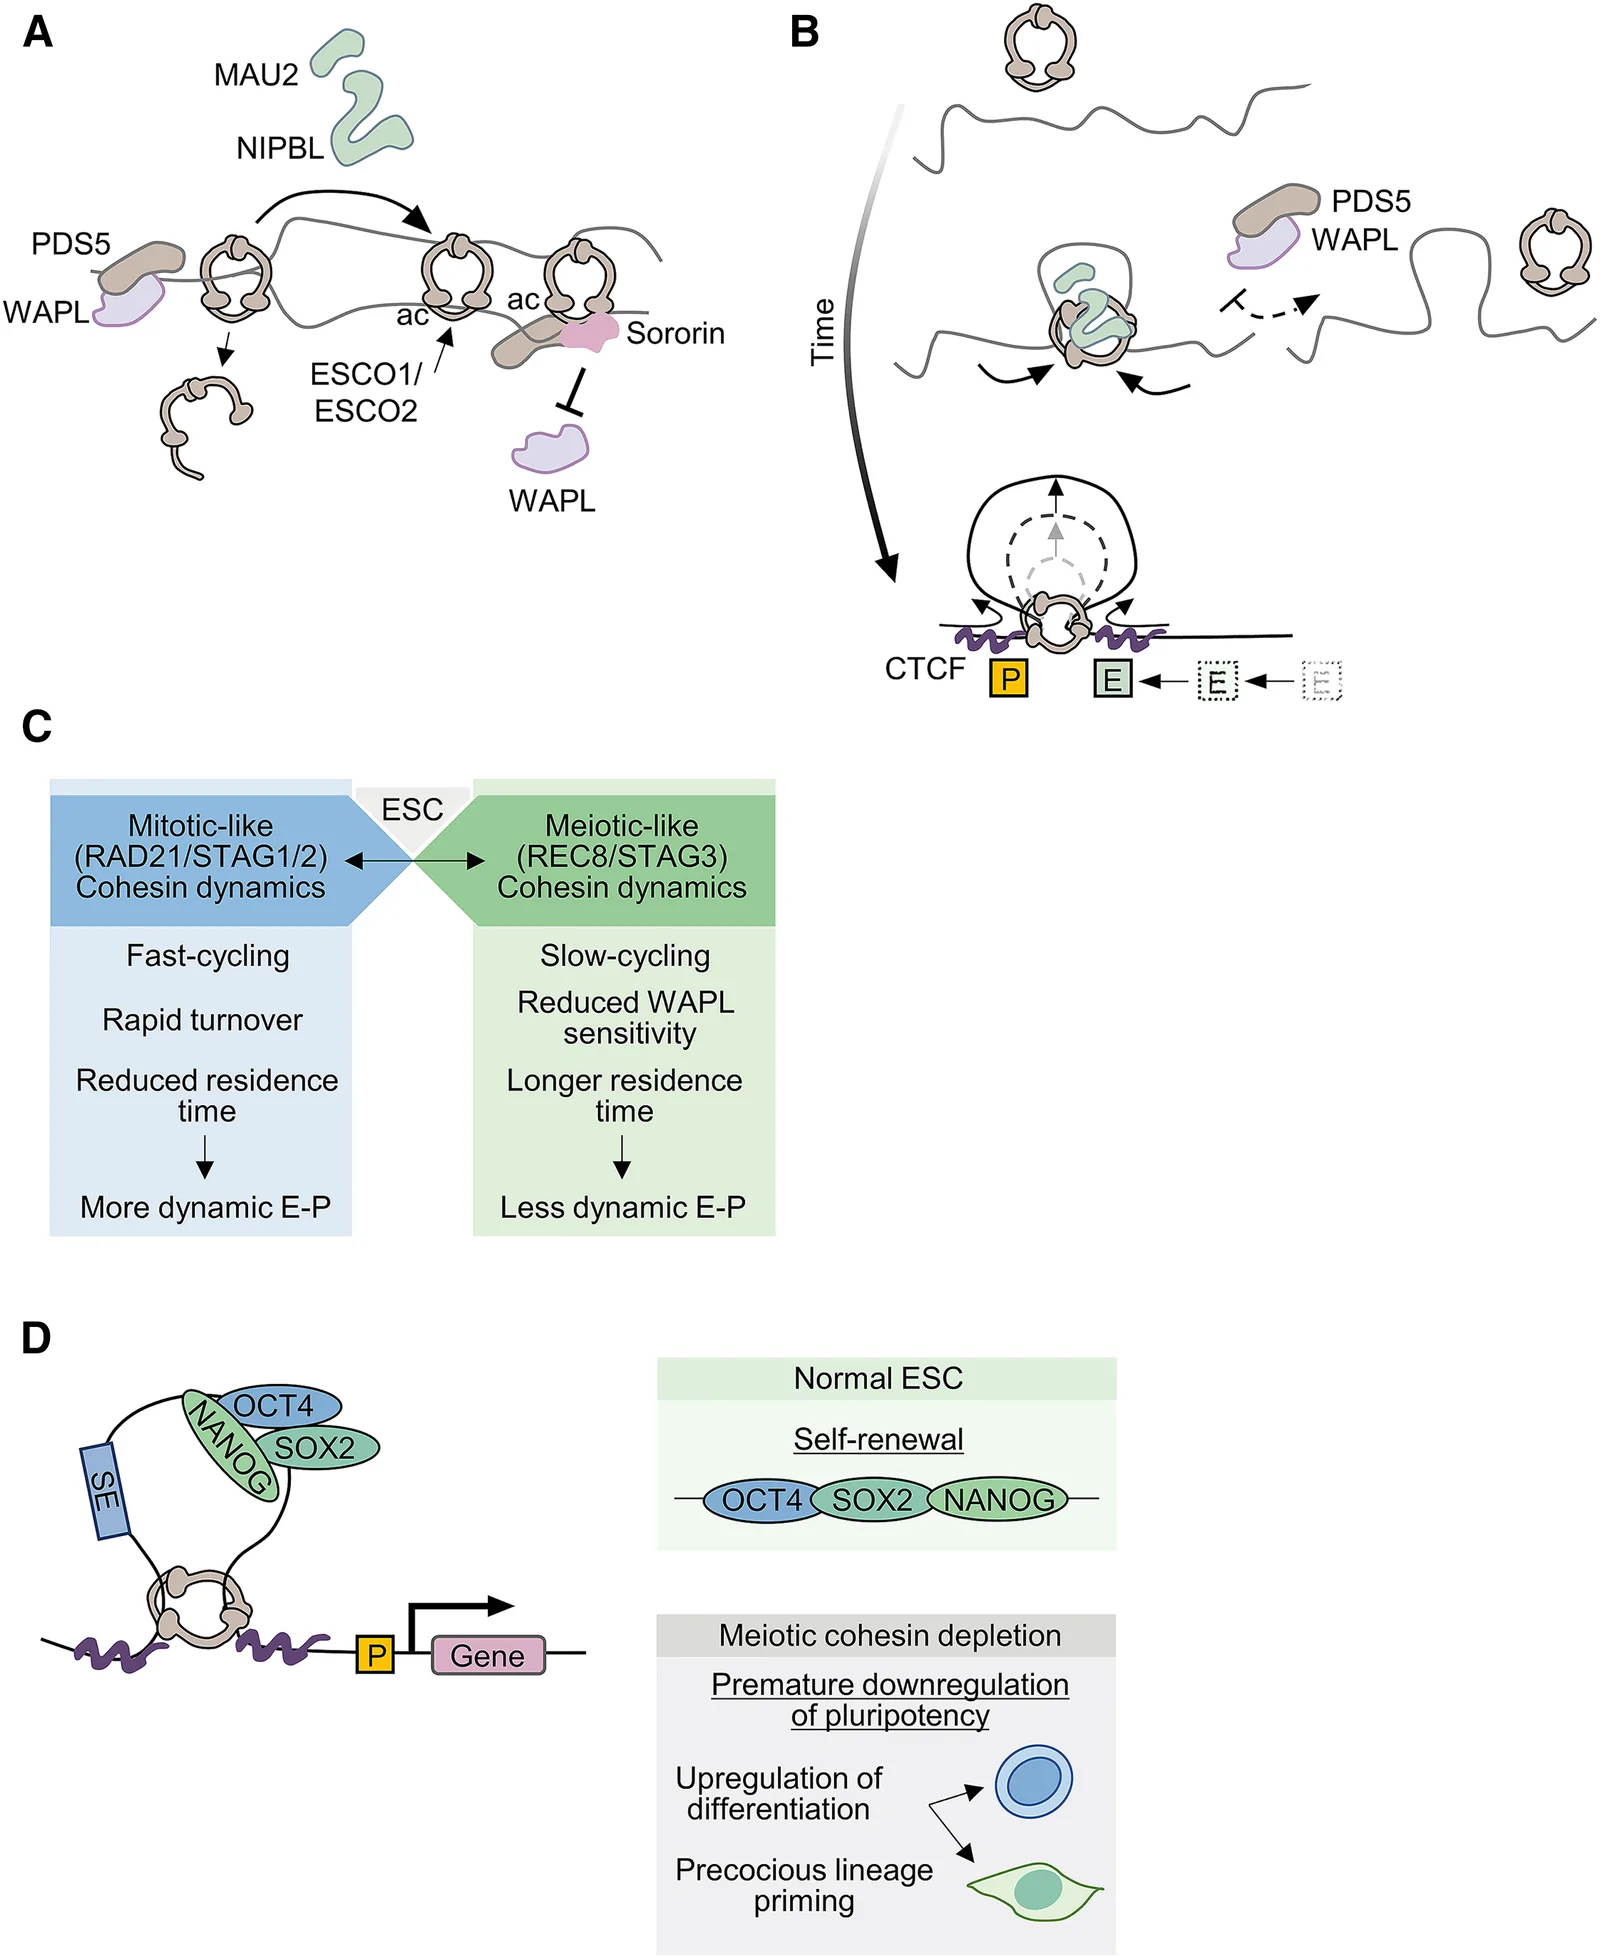
文章还强调了一个此前被低估的问题:无论黏连蛋白是以 RAD21 为核心,还是以减数分裂 kleisin 蛋白 REC8 为核心,它都不是均匀结合染色质的。相反,它被活跃的顺式调控元件和谱系决定转录因子招募和重新定位;其环挤压活性又受到 CTCF、WAPL、PDS5、Sororin 等调节因子的精细调校,以产生细胞类型特异的增强子-启动子互作。作者把这一原则推广到多能性细胞核中的减数分裂黏连蛋白变体,认为它们也遵循类似的“被调控元件读取”的逻辑。
方法亮点:多组学证据拼出非经典复合物
这篇综述本身是对已有研究的整合,但其背后依托的是一套多层次的技术证据。单细胞转录组调查在 ESC 群体中检测到 REC8 和 STAG3 转录本;靶向蛋白组学和免疫荧光在蛋白水平证实了它们的存在及染色质关联;生化共免疫沉淀(co-IP)证明它们能与 SMC3 组装成复合物;染色质映射和染色体构象捕获方法(如 Hi-C 类技术)揭示了它们的基因组占位;而功能缺失实验则把表型与复制应激、基因组不稳定联系起来。
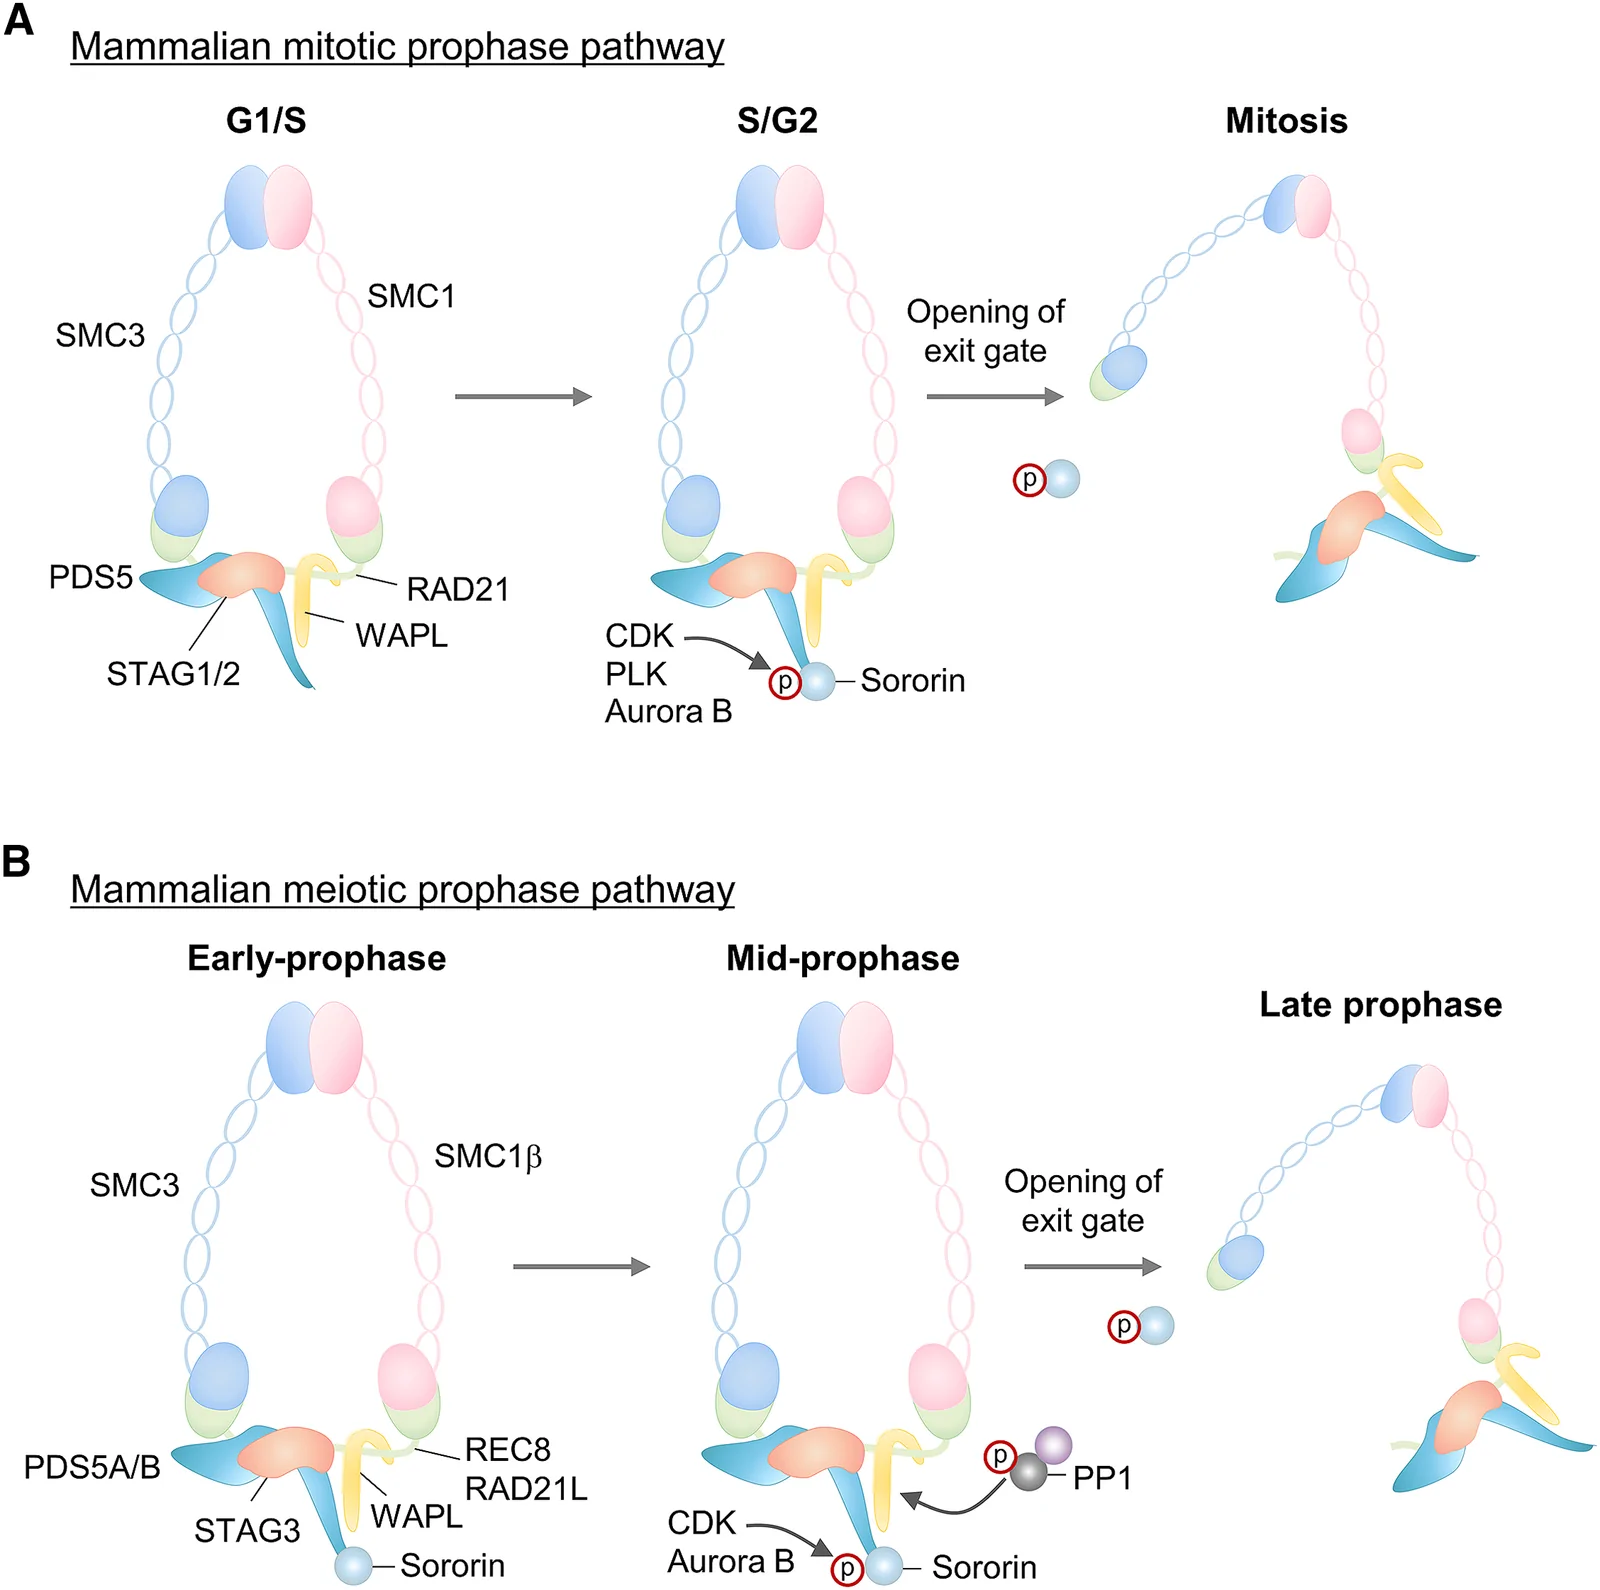
此外,冷冻电镜和晶体学研究提供了结构基础:尽管 RAD21 和 REC8 的一级序列相似性有限,但它们与 SMC ATP 酶头部的结合界面在结构上是保守的,说明环状机器的核心机械原理被保留下来。不过,REC8 带有减数分裂特异的序列插入,可招募 SGO1-PP2A 轴以保护着丝粒;STAG3 与 STAG1/2 的差异则集中在可能与 NIPBL-MAU2 和 WAPL 接触的环区,这意味着亚基替换不是简单的“备份冗余”,而是重新接线了整个装载、稳定和释放的调控回路。
应用意义:再生医学与肿瘤基因组不稳定性的新视角
这项综述的意义在于打破了“减数分裂—有丝分裂”染色体组织之间的绝对界限。作者提出,减数分裂黏连蛋白在多能干细胞中充当了染色质架构和基因表达的非经典调控者。由于黏连蛋白成分或其调控因子的突变已被关联到多种发育障碍和癌症,理解 REC8/STAG3 在体细胞及多能细胞中的异位或异常表达,有助于解释非生殖细胞中的基因组不稳定现象。
对再生医学而言,胚胎干细胞和诱导多能干细胞的基因组稳定性是临床转化的关键瓶颈。如果 REC8/STAG3 复合物确实在快速细胞周期中保护复制叉、减少有丝分裂错误,那么它们可能成为评估干细胞质量或改善基因组维护的新标志物。对肿瘤学而言,黏连蛋白保真度的丧失正在被越来越多地视为基因组不稳定的驱动因素;减数分裂亚基在非生殖细胞中的出现,或许为某些癌症中异常的染色体构象提供了新线索。
当然,文章也指出许多机制问题仍待解答:比如减数分裂亚基在 ESC 中是否像在减数分裂中那样组合使用?它们如何被细胞周期依赖性地表达和翻译后修饰重编程?这些非经典复合物怎样精确改变多能性染色质的调控输出?回答这些问题,将需要更精细的时空组学、单分子成像和条件性敲除模型。
总结:这篇综述告诉我们,干细胞里的“染色体建筑师”不止一套工具箱。减数分裂黏连蛋白 REC8 与 STAG3 走出种系限制,在多能性细胞核中参与基因调控与基因组维稳,使我们对三维基因组和干细胞生物学的理解更加复杂,也更加有趣。
本文图片转载自 PMC 开放获取全文,仅供学习参考,请以原文为准。