文章中心
了解、体验、感悟、分享——汇聚平台使用教程与科研动态。
骨肉瘤糖代谢重编程机制与靶向治疗新策略获系统解析
原文:Molecular mechanisms and targeted therapeutic strategies for glycolytic reprogramming in osteosarcoma.
期刊:Genes & diseases(影响因子 14.6) | PubMed | PMC 全文(含 PDF)
骨肉瘤是儿童和青少年中第二常见的恶性骨肿瘤,通常发生于长骨干骺端,如股骨远端和胫骨近端。其典型病理特征包括骨样基质病理性沉积、骨微环境中 mesenchymal 祖细胞恶性增殖,以及显著的侵袭性生物学行为。更棘手的是,骨肉瘤具有明显的肺转移倾向,而早期肺转移正是导致临床治疗抵抗和预后不良的关键原因。过去几十年里,新辅助化疗和广泛肿瘤切除虽改善了患者生存率,但一旦发生早期肺转移,临床结局依然不容乐观。因此,深入理解骨肉瘤的恶性进展机制,并寻找新的治疗突破口,一直是骨肿瘤研究领域的迫切任务。
近日,一篇发表于 Genes & Diseases(影响因子 14.6)的综述文章《Molecular mechanisms and targeted therapeutic strategies for glycolytic reprogramming in osteosarcoma》系统梳理了骨肉瘤中糖代谢重编程的分子网络与靶向干预前景。该研究指出,骨肉瘤细胞生长迅速、对营养物质需求巨大,因而发生了显著的代谢重编程,其核心表现是“有氧糖酵解”增强,也就是著名的瓦博格效应(Warburg effect):即便氧气充足,肿瘤细胞也大量摄取葡萄糖并产生乳酸。这种低效产能方式虽 ATP 产出不高,却能为快速增殖提供生物合成前体,并塑造酸性微环境,从而推动侵袭、转移和耐药。
研究背景:为什么聚焦“糖酵解重编程”?
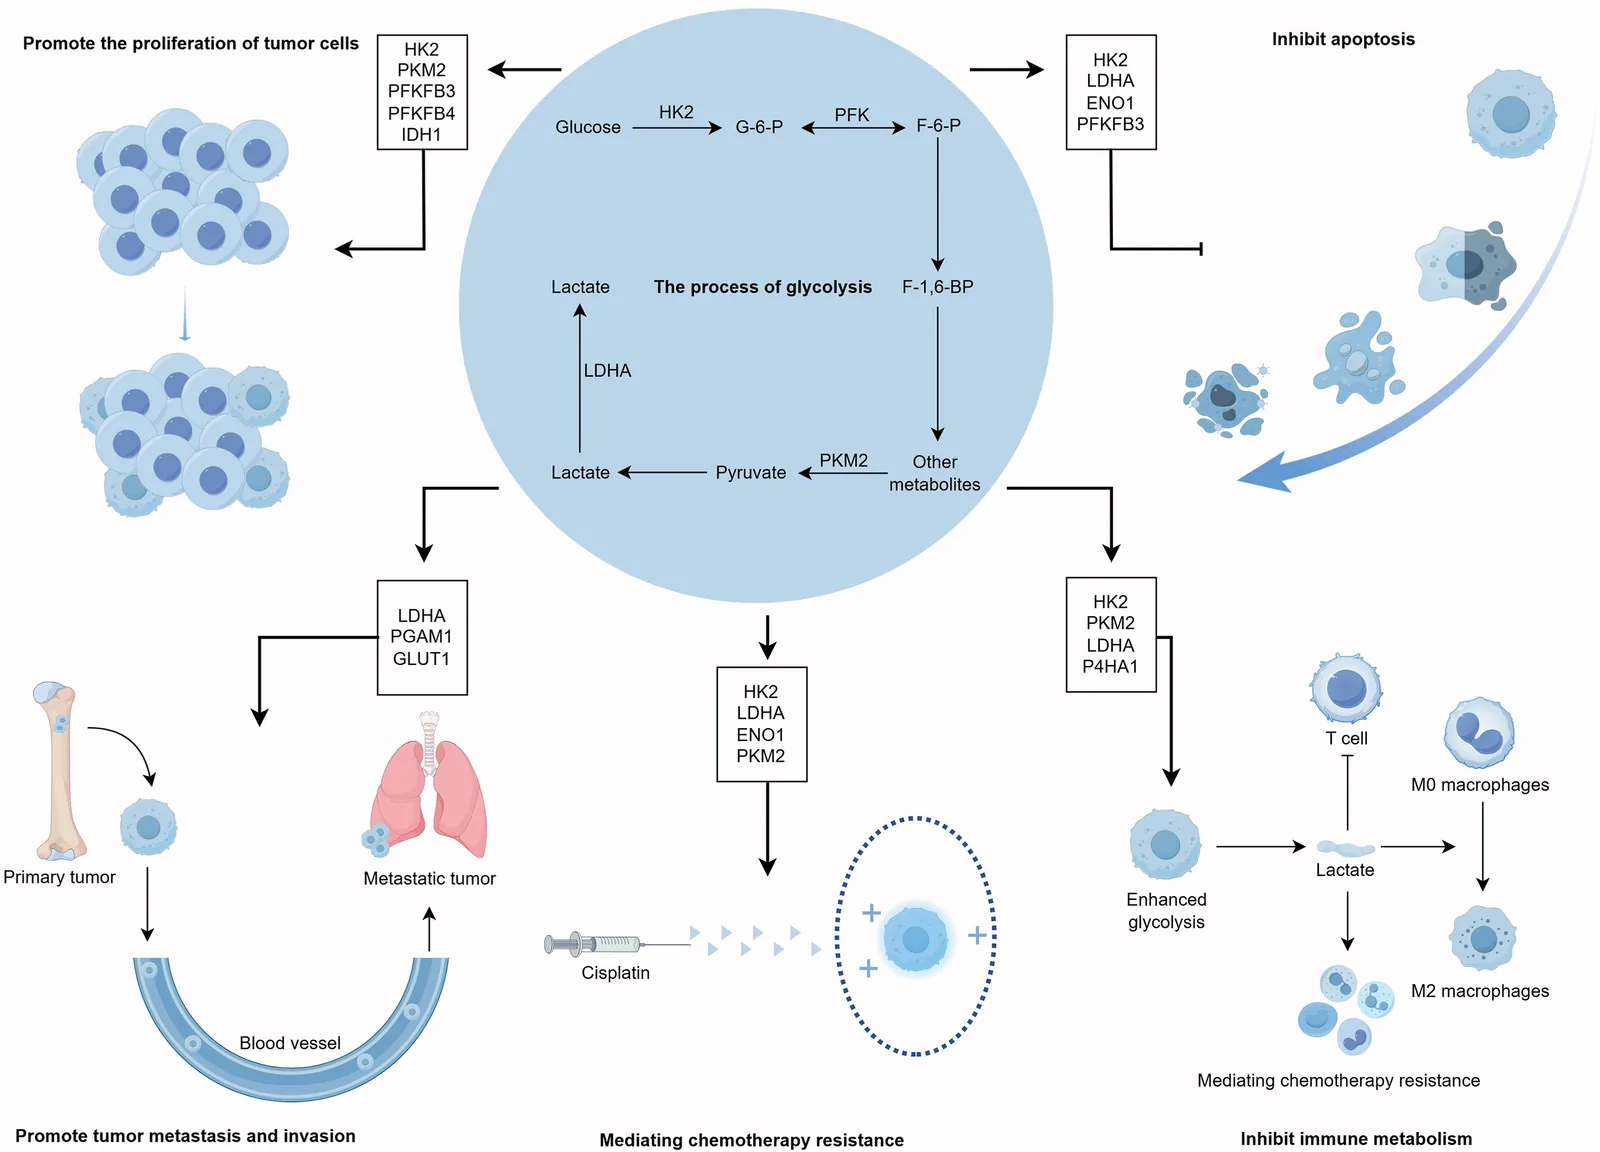
在多种肿瘤中,糖酵解都与生长、侵袭和治疗反应密切相关。对骨肉瘤而言,恶性进展高度依赖糖代谢重编程。作者开篇即描绘出驱动糖代谢重编程的多维网络:核心糖酵解酶——己糖激酶 2(HK2)、丙酮酸激酶 M2(PKM2)和乳酸脱氢酶 A(LDHA)——功能异常,并非孤立事件,而是由转录因子活性改变、表观遗传修饰以及非编码 RNA 介导的相互作用共同构成的多层次调控网络所驱动。
与此同时,线粒体功能障碍导致琥珀酸和活性氧(ROS)堆积,与上述酶网络协同促进代谢通路重塑。磷酸戊糖途径(PPP)和谷氨酰胺代谢之间的协同作用,则加速能量供应与生物合成;而乳酸堆积又会通过抑制免疫细胞功能,塑造免疫抑制性微环境。这些过程共同参与了骨肉瘤的增殖促进、凋亡抑制、侵袭转移增强、免疫代谢调控以及化疗耐药。
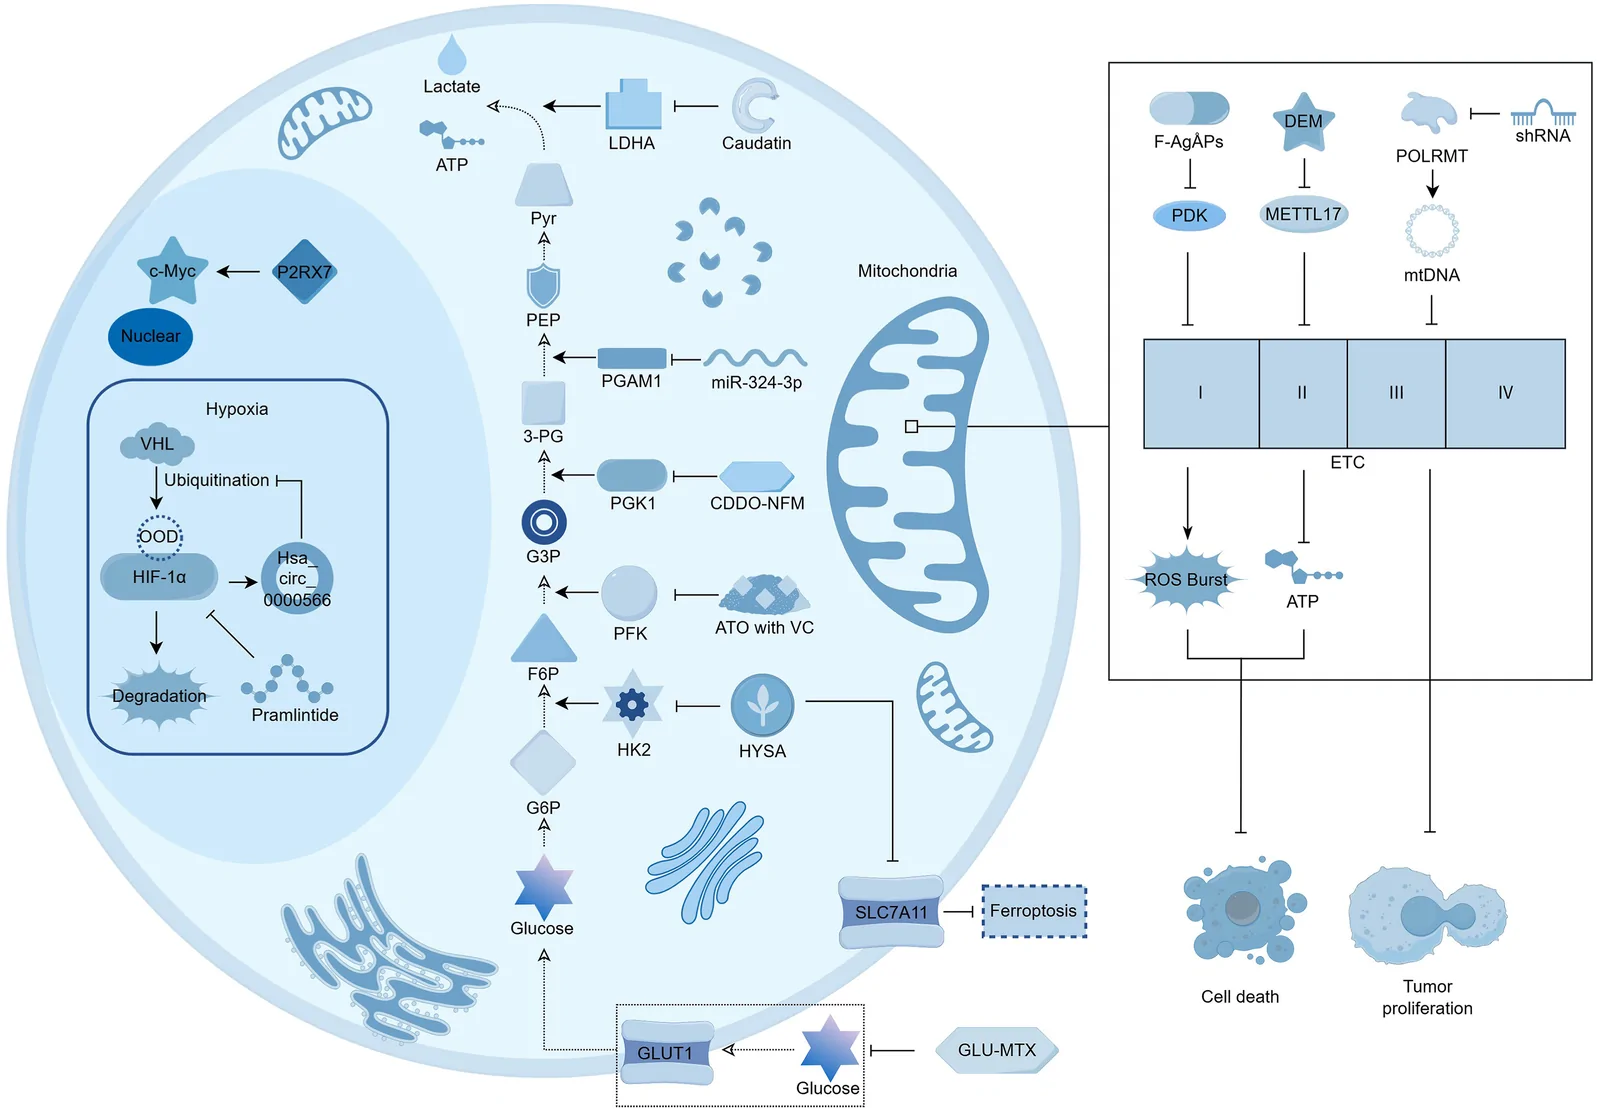
文章配套的两张示意图全景式总结了上述机制:图 1 展示了骨肉瘤糖代谢重编程的分子机制与靶向干预策略全景,图 2 则呈现了驱动骨肉瘤糖代谢重编程的多维调控网络及对应干预策略。
核心发现:从关键酶到多维调控网络
在糖酵解入口处,HK2 是起始关键酶。它结合线粒体外膜上的电压依赖性阴离子通道(VDAC),利用线粒体 ATP 将葡萄糖磷酸化为葡萄糖-6-磷酸。HK2 在包括骨肉瘤在内的多种恶性肿瘤中过表达,直接介导并增强有氧糖酵解,显著促进肿瘤生长、转移和化疗耐药;而靶向沉默 HK2 能有效抑制恶性进展,说明其处于肿瘤代谢的中心位置。
HK2 的异常高表达受复杂网络调控。在转录层面,不同癌种具有特异性:肺癌模型中主要由 MYC 驱动,缺氧诱导因子 HIF-1α 也是关键调控者;胃癌模型中 STAT3 与 HK2 协同调控。这些转录因子自身的稳定性和活性也被精细调节——例如乳腺癌中去泛素化酶 OTUB1 阻断 MYC 蛋白 K323 位点泛素化以延缓降解;胃癌中长链非编码 RNA SNHG26 通过内部核糖体进入位点激活 c-Myc–HK2 轴。c-Myc 与 HIF-1 还可协同诱导 HK2 转录,并促进血管内皮生长因子(VEGF)生成,把代谢重编程与促血管生成紧密连接。表观层面,肺腺癌模型中组蛋白甲基转移酶 NSD3 活性降低会导致 STAT3 持续磷酸化,进而驱动包括 HK2 在内的一系列糖酵解基因表达。
第二个核心节点是 PKM2。作为糖酵解关键限速酶,PKM2 通过高活性四聚体与低活性二聚体之间的动态转换调节糖酵解通量。在骨肉瘤中,长链非编码 RNA LncCCAT1 可结合 PKM2 并招募磷酸酶 Cdc25A,使 PKM2 第 37 位丝氨酸去磷酸化,促进其入核,进而激活 MYC 糖酵解通路;核内 PKM2 还能磷酸化 SREBP2 的 610 位苏氨酸,稳定该蛋白,协同增强糖酵解和脂质合成。文章也对比了其他癌种:结直肠癌中核定位 MYG1 招募 HSP90/GSK3β 复合物促进 PKM2 磷酸化;卵巢癌缺氧环境下 HIF-1α 上调 ESM1 介导 PKM2 SUMO 化与二聚化;肾癌中 PAC 纳米纤维迫使 PKM2 转为高活性四聚体以抑制糖耗并恢复对舒尼替尼的敏感性;胶质母细胞瘤中 ALDH1A3 则通过增强 PKM2 四聚化导致乳酸堆积、XRCC1 乳酰化及放化疗耐药。这些对比说明,PKM2 的“构象状态”在不同肿瘤中可产生促癌或抑癌的双重后果。
通路末端的 LDHA 催化丙酮酸转化为乳酸。LDHA 过表达直接引发微环境酸化,促进侵袭、血管生成和免疫抑制。其活性受非编码 RNA 网络调控:成骨分化中 miR-34a 直接靶向 LDHA mRNA 的 3′UTR 抑制有氧糖酵解;骨肉瘤模型中环状 RNA CIRC-0000376 作为分子海绵吸附 miR-577,解除对 HK2 和 LDHA 的抑制,从而增强肿瘤生长、侵袭和糖酵解活性;乳腺癌中 lncTMEM105 通过竞争性结合 miR-1208 促进乳酸生成;肝癌中 lncRNA HULC 直接结合 LDHA 与 PKM2 协同增强糖酵解通量。表观与翻译后修饰层面,胰腺癌研究显示组蛋白 H3K18 乳酰化通过 TTK/BUB1B–P300 正反馈环增强 LDHA 活性,并重塑肝转移中的免疫抑制微环境,导致 CD8+ T 细胞耗竭和免疫逃逸。
除三大核心酶外,文章强调线粒体功能障碍是驱动代谢重编程的“核心三联机制”之一。琥珀酸脱氢酶(SDH)异常(如 SDHB 突变)导致琥珀酸堆积;琥珀酸通过抑制脯氨酰羟化酶(PHD)并占据其 α-酮戊二酸依赖催化位点来稳定 HIF-1α,同时铜离子也通过抑制泛素化延长 HIF-1α 半衰期。稳定后的 HIF-1α 转录激活 PDK1/3、抑制丙酮酸脱氢酶复合体成分 DLAT,并直接诱导 GLUT1、HK2、LDHA 等基因,提升糖酵解通量。SDH 缺陷还引起反向电子传递、NADH 高度还原、电子漏及 ROS 过量产生;ROS 又可通过 NF-κB、PI3K/AKT、YAP、mTOR/AMPK 等多条通路调控糖酵解。另一方面,细胞色素 c 氧化酶(COX,即电子传递链复合体 IV)功能受损会降低氧化磷酸化效率并伴随 ROS 积累。文章详细列举了 mtDNA 突变(MT–CO1/2/3)、TACO1、MTFP1、PGC-1α/NRF1/UCP2 轴、HEY2、NRF2、缺氧下 HIF-1 诱导 COX4-2 与 LON 蛋白酶、SURF1 缺陷等如何破坏 COX 复合体组装与功能。作者总结:琥珀酸异常堆积、ROS 诱导的骨肉瘤细胞增殖、以及 COX 复合体失调,共同构成驱动肿瘤代谢重编程的核心三联机制。
方法亮点:多维网络与分支通路的系统拆解
该综述并非单一实验论文,而是对已有证据的系统整合与网络建模。其方法亮点在于把“糖酵解主轴”与“分支供能/合成通路”放在同一框架下审视。
磷酸戊糖途径(PPP)作为糖酵解分支,在氧化相由 G6PDH 和 6PGD 催化生成 NADPH 与 5-磷酸核糖(R5P),分别用于抗氧化防御和核苷酸合成。文章归纳了两类抑制剂:G6PDH 抑制剂如 Bay 11-7069、穿心莲内酯、槲皮素;6PGD 抑制剂如大黄素及其衍生物 S3、石榴皮、藤黄酸,并已在肺癌、乳腺癌及小鼠异种移植模型中显示选择性抑制效果。非氧化相则由转酮醇酶(TKT)和转醛醇酶(TALDO)协同调控,APC/CCDH1 复合体在 G1/S 期动态调节 R5P 逆合成以满足 DNA 合成需求,F6P 可重入氧化相补充 NADPH,G3P 则回流糖酵解,形成代谢网络切换机制。
谷氨酰胺代谢是另一协同维度。谷氨酰胺在糖酵解激活时回补三羧酸循环(TCA)中间体以维持能量稳态,参与嘌呤/嘧啶核苷酸合成,提供氮源和碳源,并转化为谷胱甘肽前体以调节氧化还原状态;还可通过转氨反应生成丙氨酸、天冬氨酸等非必需氨基酸。癌基因 c-Myc 通过双重机制驱动“谷氨酰胺成瘾”:上调转运体 SLC1A5/SLC7A5 增强摄取并激活 mTORC1,同时抑制 miR-23a/b 解除对谷氨酰胺酶(GLS)的抑制。LINC01764 可协同促进葡萄糖与谷氨酰胺代谢并导致 5-FU 耐药。干预策略包括:芪慈三棱汤(QCSL)抑制 c-Myc 下调 GLS1/SLC1A5 诱导膀胱癌细胞凋亡;前药 JHU395 穿越血脑屏障靶向髓母细胞瘤 MYC 驱动的谷氨酰胺依赖;人参皂苷 Rk1 经 ERK/c-Myc 轴抑制 GLS1 引发线粒体凋亡。α-酮戊二酸(α-KG)作为谷氨酰胺代谢核心终产物,以 PHD 依赖方式激活 mTORC1,驱动促癌效应并参与 DNA 损伤修复相关过程。
应用意义:从机制到靶向治疗与转化挑战
在应用层面,文章评估了针对骨肉瘤糖代谢关键节点的新治疗策略,包括特异性小分子抑制剂和基因调控手段的临床前研究进展。例如前述 PPP 抑制剂、谷氨酰胺代谢干预剂,以及围绕 HK2、PKM2、LDHA 的基因沉默或功能调控,都为逆转糖酵解重编程提供了工具箱。
然而,转化研究仍面临重大挑战:代谢异质性使不同肿瘤甚至同一肿瘤内部细胞依赖不同通路;靶向选择性不足可能伤及正常细胞;代偿性耐药则让单一节点抑制后肿瘤通过旁路重新供能。为此,作者展望未来方向:多组学分析以解析个体化代谢图谱、智能递送系统提升药物特异性、类器官模型更好模拟体内微环境、以及联合免疫治疗打破乳酸介导的免疫抑制。
总体而言,这项综述为克服骨肉瘤治疗瓶颈提供了新视角:不再只盯着“杀死快速分裂细胞”的传统化疗逻辑,而是从能量代谢源头——糖酵解重编程及其与线粒体、PPP、谷氨酰胺、免疫微环境的交互网络——寻找可干预的脆弱节点。对骨肉瘤这一易早期肺转移、预后差的青少年恶性骨肿瘤而言,把代谢机制转化为精准治疗策略,或将成为改善临床结局的重要路径。
本文图片转载自 PMC 开放获取全文,仅供学习参考,请以原文为准。